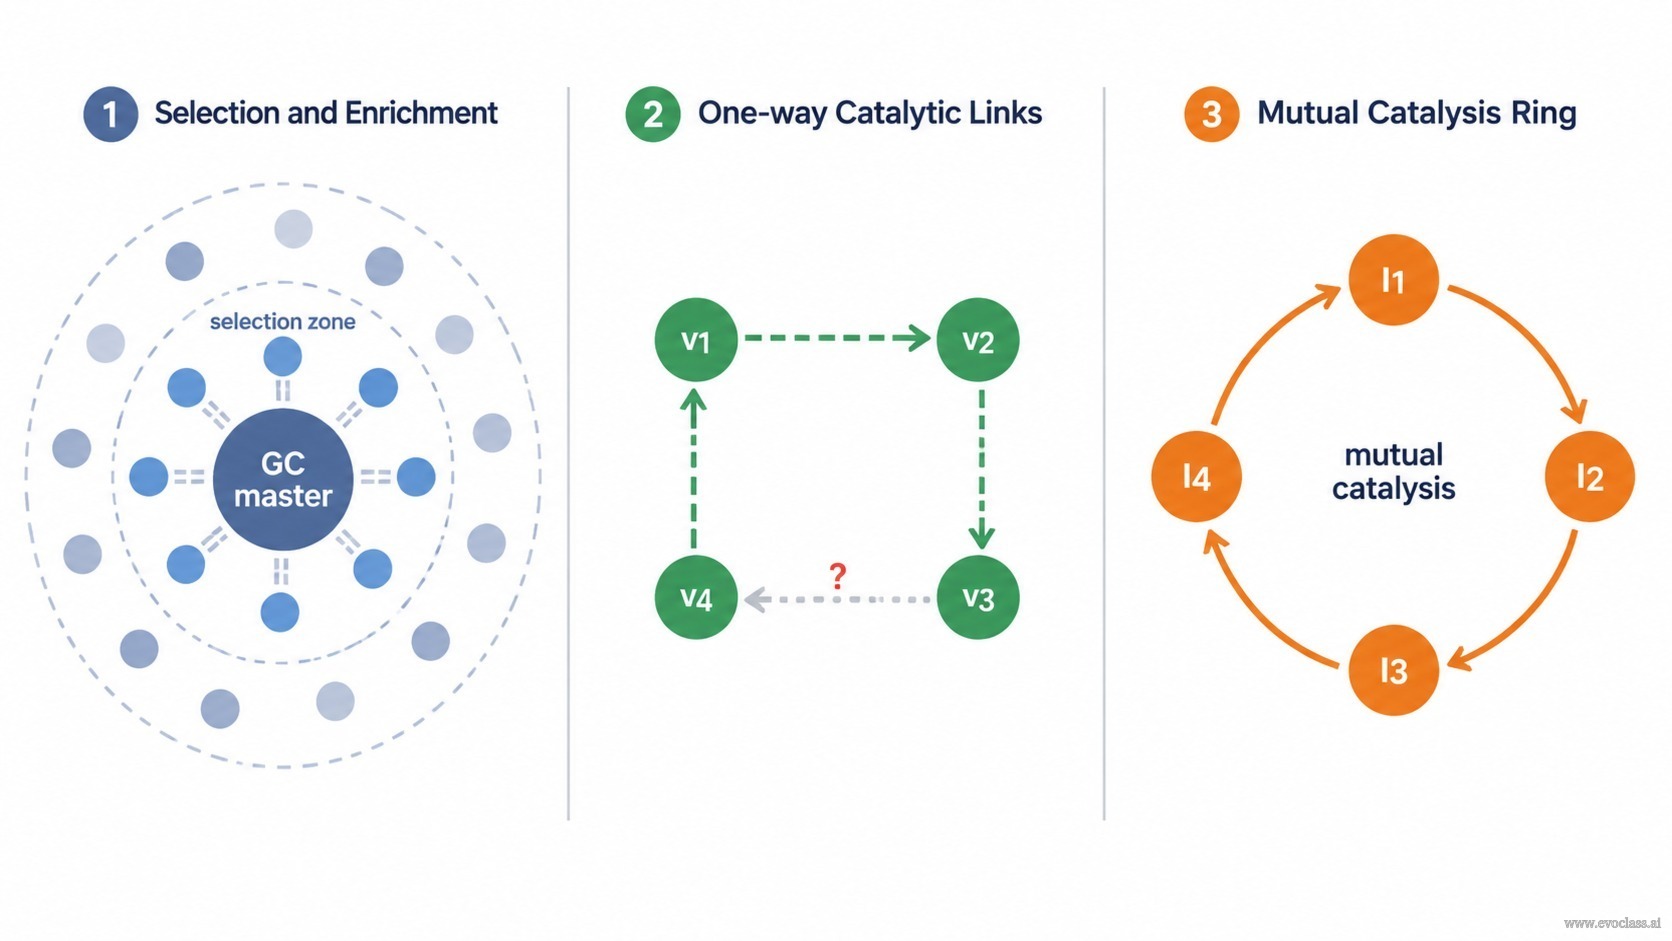
A 超循環 是一個由互相催化彼此複製的複製子組成的閉合集合。因為循環由 互相 多個不同序列之間的催化作用,無法從單一模板拷貝中成核:一個分子並不包含整個循環功能,而它的第一個拷貝也沒有可與之閉合迴路的催化夥伴。因此,超循環組織不可能突然出現;它必須在族群層面上逐步組裝,而這種組裝最合理的搖籃是富含 GC 的準物種。
為何單一模板無法啟動迴路
自催化複製子是自給自足的:一條能模板化自身拷貝的單鏈,能從一個分子指數增長,因為該分子與其產物具有相同功能。超循環並非此類。其定義性特徵是一個 催化支持的閉合迴路 其中成員 i 增強成員 j 的複製,j 增強 k,如此類推,直到迴路回到 i。移除任何單一成員,其餘成員便無法再生成它。因此,任何一個成員的第一個拷貝都是死路:它沒有互補的夥伴,也不存在能優先擴增它的閉合催化迴路。
富含 GC 的準物種提供原料
準物種不是單一序列,而是一團由突變相連的相關序列,圍繞著一個占主導、類似主序列的序列分布。在富含 GC 的池中,這團序列異常充實。每一對額外的 G–C 配對貢獻第三個氫鍵,因此富含 GC 的莖在高溫下才解鏈,摺疊更可靠,並在其二級結構崩解前能耐受更多點突變。因此,這個儲備庫同時具備成核問題所需的兩件事:變異體在環、莖和表面幾何上高度局部多樣,以及足夠的結構穩定性,使個別變異體能保持功能足夠久,以接受選擇的檢驗。
突變探索耦合,選擇將其保留
突變探索才是真正搜尋相互作用空間的過程。一個點替換可以重塑髮夾結構、暴露新的結合表面,或招募依賴金屬離子的催化中心,從而改變弱耦合係數
從準物種組織到超循環組織
隨著連結累積,突變體分布改變形狀。多樣性不再圍繞單一主序列分布;它凝聚向一小群相互催化的模板,而只有在連結足夠多、使網絡得以閉合而非僅是開放或分支時,環閉合才會發生。閉合之前,整體表現為帶有一些相關變異體的準物種。閉合之後,生長是合作性且超加性的:迴路作為一個單位增殖,且由於每個成員餵養下一個,這個耦合集合能勝過爭奪相同單體和複製酶的孤立準物種。這就是超循環如何在沒有任何預先形成的多基因基因組的情況下出現——透過招募並整合已存在於富含 GC 儲備庫中的突變基因。對雙成員情形的底層不動點分析以速率係數形式表達了同一要點:這對成員最終是競爭排斥、其中一個成員被選中,還是穩定的超循環共存,僅取決於自我增強與相互增強的相對大小,而該判據可推廣到三成員和 n 成員迴路。
當路徑失敗時
- 複製保真度 必須保持在錯誤閾值之上。若突變率過高,儲備庫會消散成一團瀰漫的雲,其中沒有任何變異體能存續足夠久以建立連結。
- 功能相容性 很重要:成員之間不得對彼此的摺疊或催化造成破壞性干擾,否則累積的連結會相互抵消而非相互強化。
- 寄生負荷 必須保持低水平。一個自私的模板若因新興迴路而高效複製,卻不回饋任何催化,就會耗盡共享資源,並可能在網絡閉合前使其不穩定。
實例概述。 在富含 GC 的 RNA 池中,一個占主導的類 GGC/GCC 序列及其突變體形成準物種。一個突變體可能弱弱地協助鄰近序列的複製,而選擇會保留雙方,因為它們的聯合產量超過任何一方單獨所能達到的。進一步的突變產生相互協助,原本缺失的分支被補上,一個雙成員或更大的迴路便閉合。一旦閉合,超循環生長便勝過孕育它的孤立準物種。
從富含GC的準物種中湧現
三個階段由左至右閱讀。首先,一個富含 GC 的主序列位於突變雲的中心,內部的選擇區標示出逐步被富集的變異體,而穩定的 GC 鹼基對保護它們的摺疊結構。其次,存活的變異體由弱的單向催化連結相連,仍有一個連接以虛線表示,因為網絡尚未閉合。第三,這些連結變為相互的,網絡閉合成一個超循環環,其中每個成員催化下一個,因此整個集合能勝過孤立的準物種。