在一個 翻譯耦合超循環,每個 RNA 模板不僅被複製,還被翻譯成多肽,該多肽通過可逆複合物形成結合回 RNA。該結合步驟以解離常數
為何低總濃度會簡化動力學
當 RNA 與多肽的總濃度遠小於
- 游離物種佔主導。 [複合物] 遠小於 [RNA] 與 [多肽],因此動力學由游離物種而非結合物質所主導。
- 雙線性複合物濃度。 [複合物] ≈ [RNA][多肽]/Kd,即與 乘積 成正比,而非與其中任一單獨濃度成正比。
- 二階催化通量。 由於複合物是催化劑,介導通量 kcat[RNA][多肽]/Kd ≈ (kcat/Kd)[RNA][多肽] 是二階質量作用項——正是基本超循環所用的耦合形式。
有效速率常數與保留的拓撲結構
結合常數與催化常數僅透過其組合進入,因此可被吸收為單一有效速率常數 keff = kcat/Kd。結果是一個具有重歸一化係數的基本超循環。關鍵在於,循環耦合拓撲結構得以保留:每個成員仍催化循環中下一個成員的複製,而翻譯在此極限下不引入獨立的動力學耦合——它僅重新縮放速率。這就是為何每當稀釋條件成立時,為基本超循環所建立的定點、穩定性、極限環與誤差閾值分析,可直接套用於翻譯耦合超循環,而這正是此簡化對選擇與誤差閾值推理如此有用的原因。
簡化失效之處
此簡化是漸近的,並非恆等式。它僅在複合物形成未飽和時有效。當總濃度升高趨近
有效性條件
僅當 [RNA] 與 [多肽] 遠低於
翻譯耦合超循環的低濃度極限
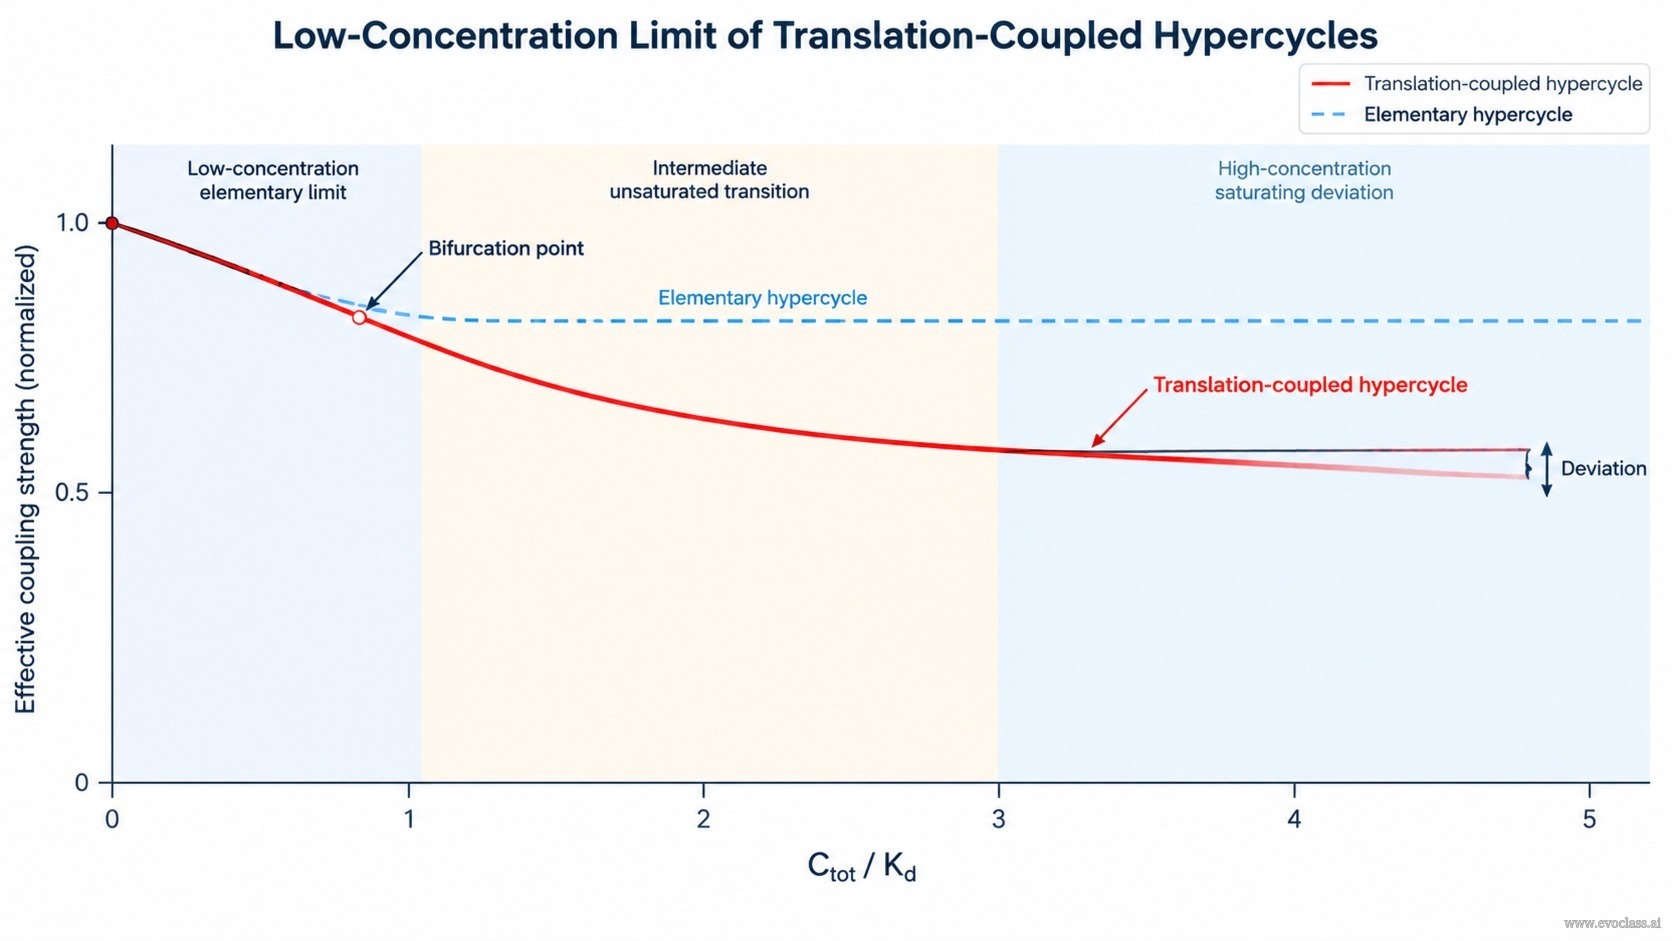
翻譯耦合超循環的有效耦合強度對無量綱總濃度 C_tot/K_d 作圖。在低值時,實線的翻譯耦合曲線與虛線的基本超循環參考重合,因為稀疏、未飽和的 RNA-多肽複合物給出具有有效常數 k_cat/K_d 的雙線性催化通量;隨著濃度增大,複合物飽和,兩條曲線分離。
翻譯耦合超循環的低濃度極限
翻譯耦合超循環的有效耦合強度對無量綱總濃度 C_tot/K_d 作圖。在低值時,實線的翻譯耦合曲線與虛線的基本超循環參考重合,因為稀疏、未飽和的 RNA-多肽複合物給出具有有效常數 k_cat/K_d 的雙線性催化通量;隨著濃度增大,複合物飽和,兩條曲線分離。