在 翻译耦合超循环,每个 RNA 模板不仅被复制,还被翻译为多肽,该多肽通过可逆复合物形成结合回 RNA。该结合步骤以解离常数
为什么低总浓度简化动力学
当 RNA 和多肽的总浓度远小于
- 游离物种占主导。 [复合物] 远小于 [RNA] 和 [多肽],因此动力学由游离物种而非结合物质承载。
- 双线性复合物浓度。 [复合物] ≈ [RNA][多肽]/Kd,即与 乘积 成正比,而非与其中任一单独浓度成正比。
- 二阶催化通量。 由于复合物是催化剂,介导通量 kcat[RNA][多肽]/Kd ≈ (kcat/Kd)[RNA][多肽] 是二阶质量作用项——正是基本超循环所使用的耦合形式。
有效速率常数与保持的拓扑结构
缔合常数和催化常数仅通过其组合进入,因此可吸收为单一有效速率常数 keff = kcat/Kd。结果是具有重整化系数的基本超循环。关键在于,循环耦合拓扑得以保留:每个成员仍催化循环中下一个成员的复制,且在此极限下翻译不引入独立的动力学耦合——它仅重新缩放速率。这就是为什么为基本超循环建立的定点、稳定性、极限环和误差阈值分析,只要稀薄条件成立,就能直接适用于翻译耦合超循环,而这正是该约化对选择和误差阈值推理如此有用的原因。
约化失效之处
该约化是渐近的,而非恒等式。它仅在复合物形成未饱和时有效。当总浓度升高至
有效性条件
仅在 [RNA] 和多肽远低于
翻译耦合超循环的低浓度极限
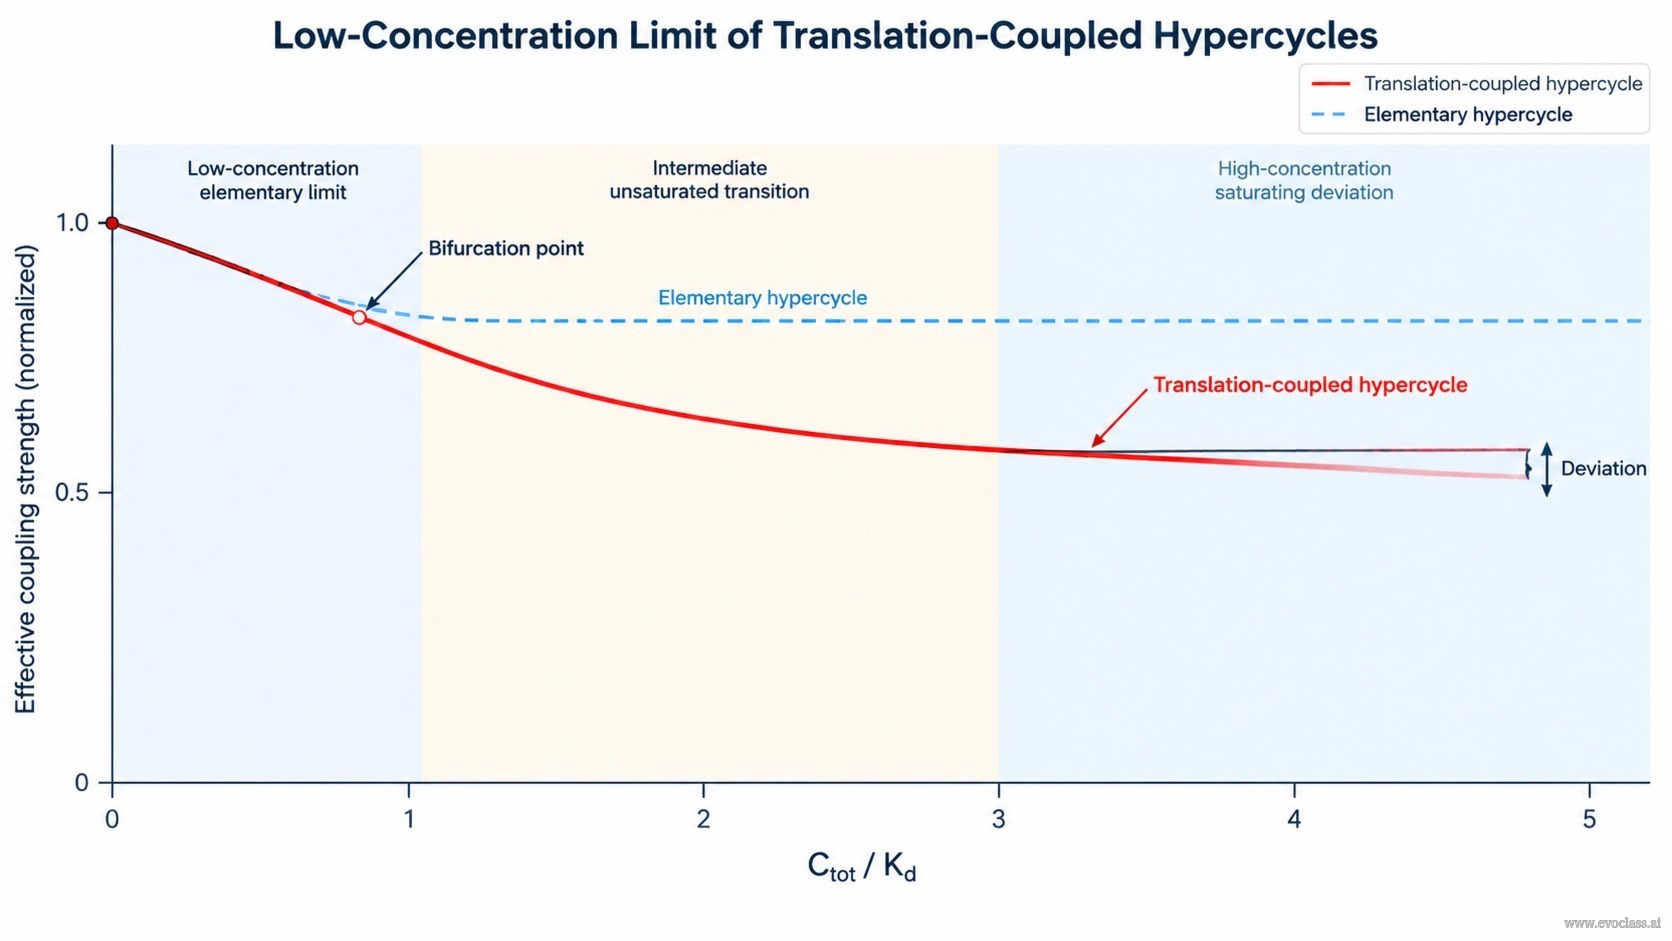
翻译耦合超循环的有效耦合强度对无量纲总浓度 C_tot/K_d 作图。在低值时,实线翻译耦合曲线与虚线基本超循环参考合并,因为稀疏、未饱和的 RNA-多肽复合物给出具有有效常数 k_cat/K_d 的双线性催化通量;随着浓度增大,复合物饱和,两条曲线分离。
翻译耦合超循环的低浓度极限
翻译耦合超循环的有效耦合强度对无量纲总浓度 C_tot/K_d 作图。在低值时,实线翻译耦合曲线与虚线基本超循环参考合并,因为稀疏、未饱和的 RNA-多肽复合物给出具有有效常数 k_cat/K_d 的双线性催化通量;随着浓度增大,复合物饱和,两条曲线分离。