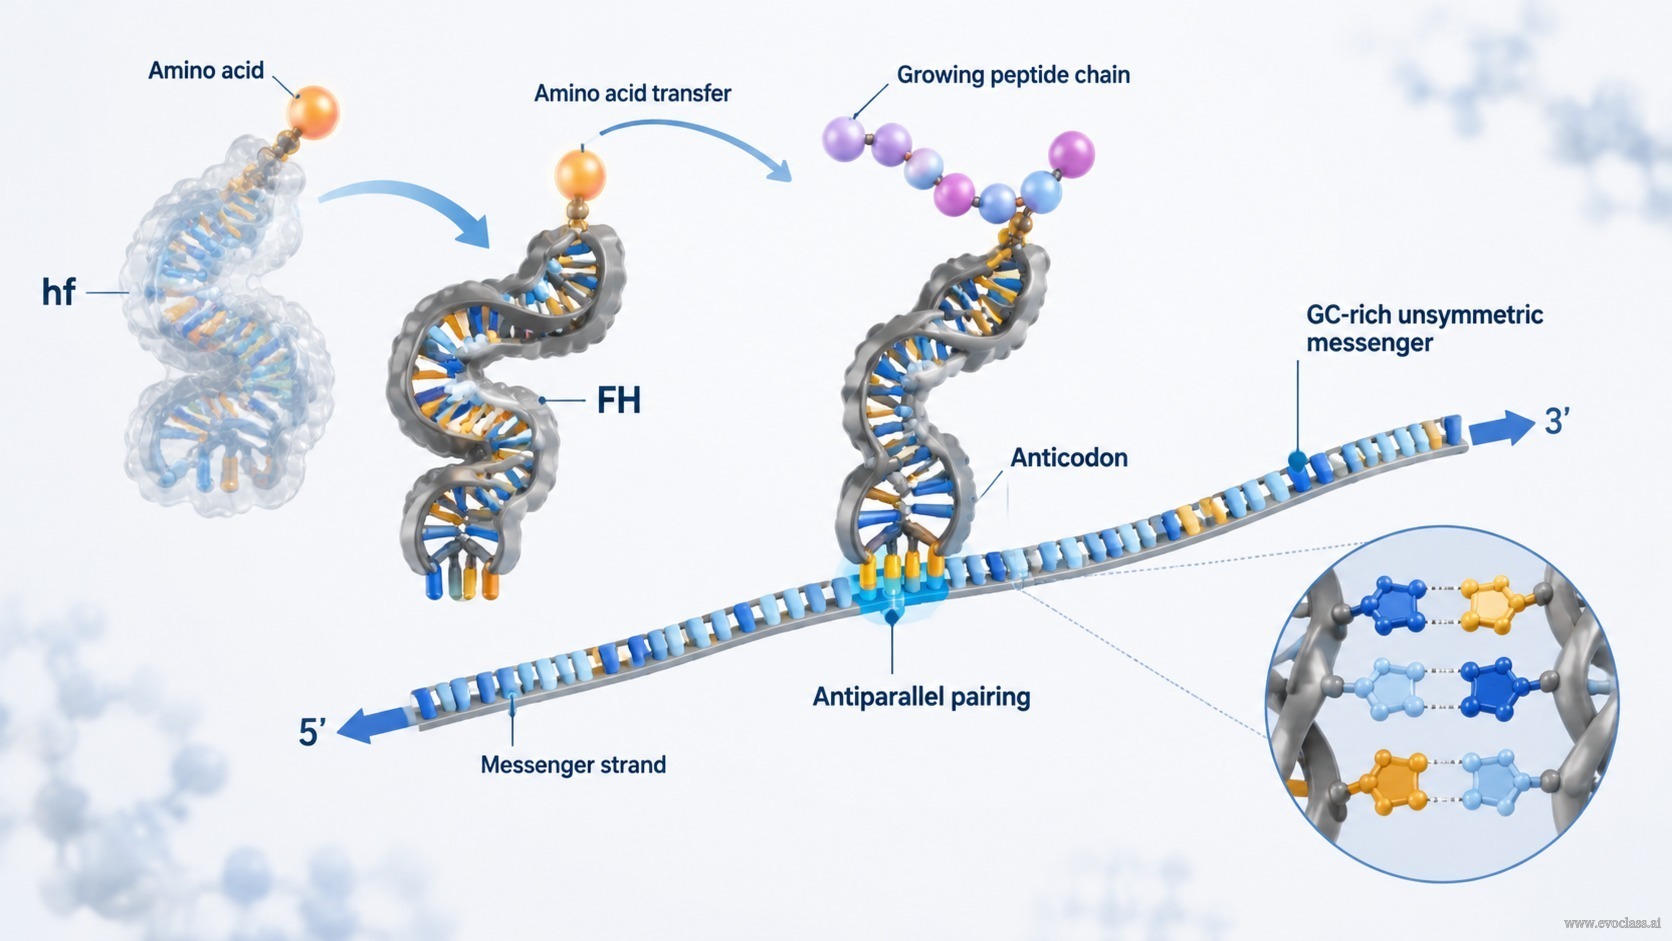
การแปลรหัสในสิ่งมีชีวิตยุคแรกไม่จำเป็นต้องเริ่มต้นด้วยไรโบโซมที่ประกอบสมบูรณ์แล้ว โมเดลดังกล่าวเสนอว่า ตัวปรับต่ออย่างง่ายคล้าย tRNA สามารถอ่านตัวนำสารได้ด้วยการจับคู่แบบComplementaryและแบบantiparallel โดยมีเงื่อนไขว่าต้องมีตัวช่วยเร่งปฏิกิริยาสำหรับการสร้างพันธะเพปไทด์ รูปร่างของตัวปรับต่อขึ้นอยู่กับสิ่งที่มันบรรทุก: มันจะอยู่ในรูปร่าง รูปร่าง hf เมื่อบรรทุกกรดอะมิโน และอยู่ในรูปร่าง รูปร่าง FH เมื่อบรรทุกสายเพปไทด์ การถ่ายโอนกรดอะมิโนไปยังสายเพปไทด์ที่กำลังelongateจะพลิกตัวปรับต่อจาก hf เป็น FH (ดูรูปที่ 49)
เนื่องจากการจัดเรียงตัวปรับต่อ–ตัวนำสารเป็นแบบantiparallel ข้อความจึงสามารถอ่านออกได้โดยไม่ต้องมีเครื่องมือแปลรหัสที่ซับซ้อน การเลือกรูปแบบเริ่มต้นที่อุดมด้วย GC ถูกกำหนดโดยข้อโต้แย้งสี่ประการ ได้แก่ ความเสถียรของปฏิสัมพันธ์ระหว่างตัวปรับต่อกับตัวนำสาร และความแม่นยำในการจำลองแบบ ซึ่งทั้งสองอย่างสนับสนุนให้เริ่มต้นด้วยคู่ GC และการอ่านแบบไม่มีเครื่องหมายคั่นในการแปลรหัสซึ่งต้องใช้รูปแบบ GC ที่ไม่สมมาตร ดังนั้นรูปแบบตัวนำสารแบบไม่มีเครื่องหมายคั่นจึงเกิดขึ้นจากรูปแบบ GC ที่ไม่สมมาตรซึ่งช่วยให้อ่านได้โดยไม่ต้องมีเครื่องหมายคั่นหรือเครื่องจักรการแปลรหัสที่ซับซ้อน
ประเด็นกลไกสำคัญ
- ตัวช่วยเร่งปฏิกิริยา ยังคงจำเป็นสำหรับหน้าที่การแปลรหัส แต่การแปลรหัสในยุคแรกอาจใช้ตัวปรับต่ออย่างง่ายแทนไรโบโซมที่สมบูรณ์
- รูปร่างที่ขึ้นอยู่กับสิ่งที่บรรทุก: รูปร่างของ tRNA ขึ้นอยู่กับว่ามันบรรทุกกรดอะมิโนหรือสายเพปไทด์ การถ่ายโอนจะพลิก hf เป็น FH
- การจับคู่แบบantiparallel: การจัดเรียงแบบComplementaryระหว่างตัวปรับต่อกับตัวนำสารเป็นแบบantiparallel ช่วยให้อ่านออกได้โดยไม่ต้องมีเครื่องมือที่ซับซ้อน
- รูปแบบที่อุดมด้วย GC และไม่สมมาตร: ความเสถียรและความแม่นยำในการจำลองแบบสนับสนุน GC; การอ่านแบบไม่มีเครื่องหมายคั่นต้องใช้ GC ที่ไม่สมมาตรเพื่อหลีกเลี่ยงความกำกวมของเฟรมที่ทับซ้อนกัน
การอ่านตัวนำสารด้วยตัวปรับต่อ
แผนภาพนี้แสดงตัวปรับต่อคล้าย tRNA ในรูปร่าง hf และ FH การจับคู่แบบComplementaryและantiparallelกับตัวนำสารที่อุดมด้วย GC และไม่สมมาตร และการถ่ายโอนกรดอะมิโนที่พลิก hf เป็น FH ซึ่งช่วยให้อ่านแบบไม่มีเครื่องหมายคั่นได้โดยไม่ต้องมีไรโบโซมที่ซับซ้อน