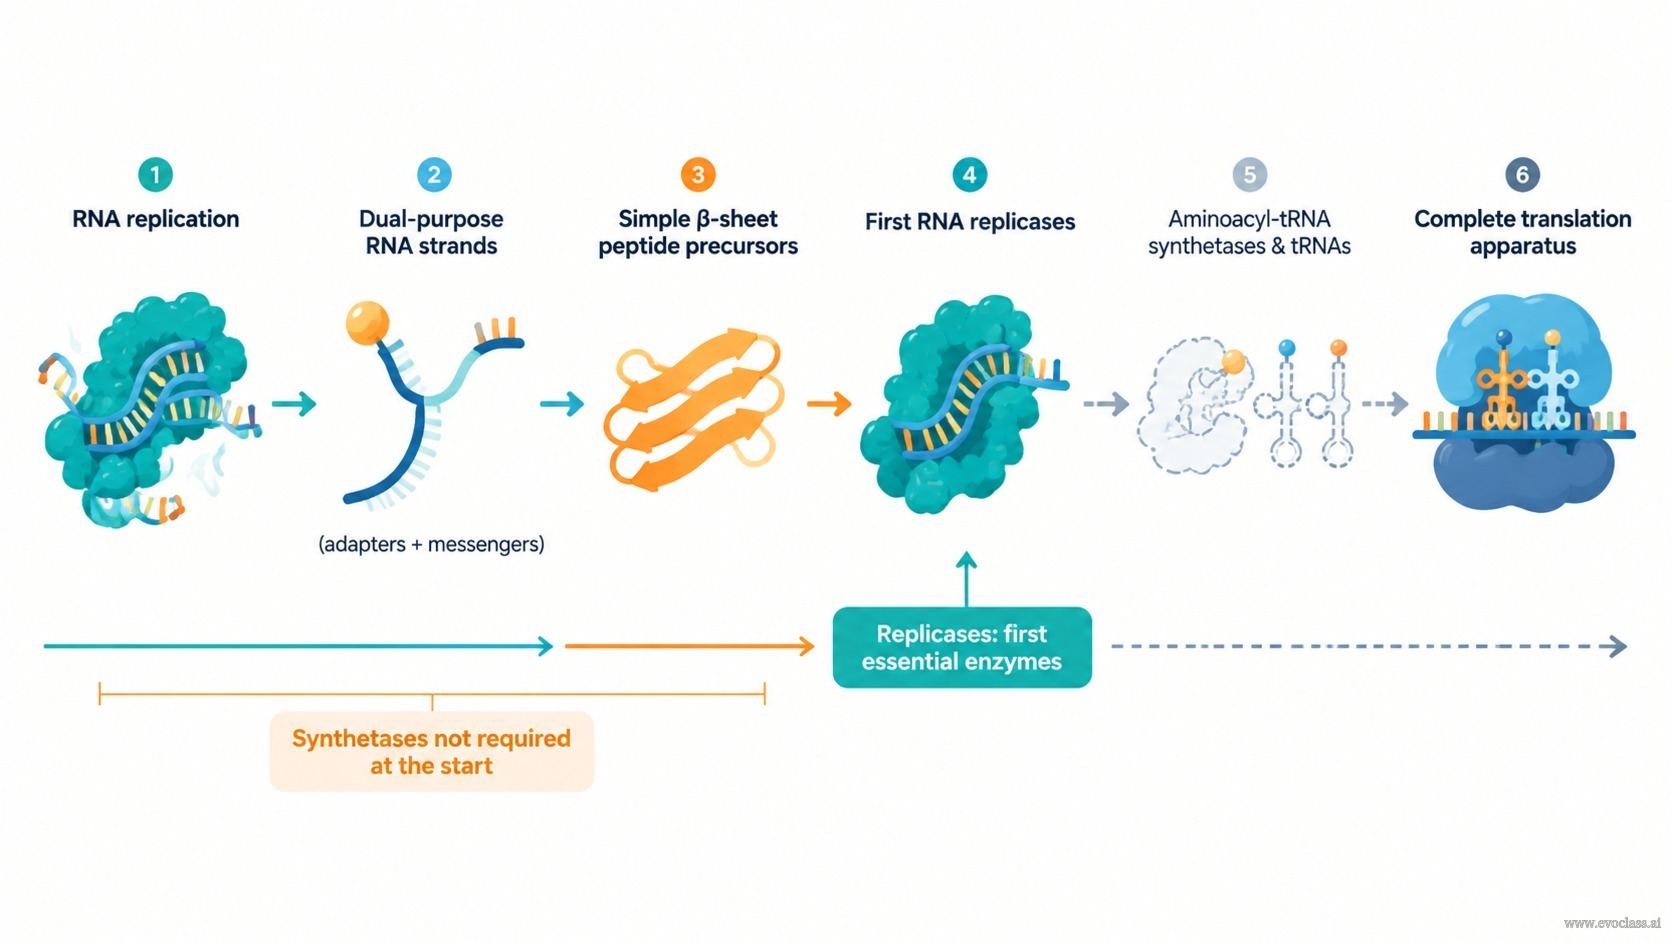
ขั้นตอนปิดท้ายของบทเรียนนี้ตั้งคำถามที่คมชัดโดยเจตนา: อะไรต้องมีอยู่แล้วเพื่อให้การสังเคราะห์เปปไทด์และการเก็บข้อมูลถูกเชื่อมโยงเข้าด้วยกันได้เลย? เมื่ออ่านอย่างละเอียด เนื้อหาต้นฉบับไม่ได้ตอบว่า "เครื่องมือแปลรหัสแบบง่าย" คำตอบคือระบบแรกสุดเป็น ระบบเร่งปฏิกิริยาที่ถ่ายทอดทางพันธุกรรมได้น้อยที่สุดโดยที่สาย RNA ทำหน้าที่เป็นทั้งเมสเซนเจอร์และอะแดปเตอร์พร้อมกัน และตัวเร่งปฏิกิริยาที่จำเป็นอย่างแท้จริงตัวแรกคือ รีพลิเคส — ไม่ใช่อะมิโนแอซิล-tRNA ซินทีเทส.
การเชื่อมโยงเชิงหน้าที่ก่อนเครื่องมือที่สมบูรณ์
การเชื่อมโยงเชิงหน้าที่หมายความว่าอะแดปเตอร์ที่พาอะมิโนแอซิดและเมสเซนเจอร์ที่พาแม่แบบถูกจดจำโดยเครื่องจักรดึกดำบรรพ์เดียวกัน หากสาย RNA หนึ่งเดียวสามารถพับเป็นโครงสร้างคล้ายอะแดปเตอร์และทำหน้าที่เป็นแม่แบบได้ด้วย จำนวนองค์ประกอบอิสระที่จำเป็นสำหรับการสังเคราะห์เปปไทด์คล้ายการแปลรหัสก็ลดลงอย่างมาก ในรูปแบบเช่นนี้ การเกิดพันธะเปปไทด์จึงเป็นไปได้ ก่อน ที่จะมีไรโบโซม ก่อนที่จะมี tRNA ครบชุด และก่อนที่ซินทีเทสใด ๆ จะมีอยู่
- สายอเนกประสงค์ RNA หนึ่งเดียวสามารถรวมบทบาทเมสเซนเจอร์ (แม่แบบ) และบทบาทอะแดปเตอร์เข้าด้วยกัน ซึ่งเป็นสิ่งที่ระบบแปลรหัสยุคแรกน้อยที่สุดต้องการพอดี
- การเติมประจุโดยตรง ความสัมพันธ์ระหว่าง RNA กับอะมิโนแอซิดและการถ่ายโอนเปปไทด์โดยไม่ต้องมีไรโบโซมสามารถให้ขั้นตอนการกระตุ้นเริ่มต้นที่ซินทีเทสทำในเซลล์สมัยใหม่
- ความยืดหยุ่นของโครงสร้าง ความยืดหยุ่นที่เผยให้เห็นจากการจัดเรียงลำดับ tRNA คือสิ่งที่ทำให้สายหนึ่งสามารถทำหน้าที่สองบทบาทพร้อมกันได้พอดี
- ตัวเร่งปฏิกิริยาอย่างง่าย เปปไทด์ที่มีฤทธิ์เชิงหน้าที่ตัวแรกน่าจะเป็นเปปไทด์บีตา-ชีตสั้น ๆ หรือเปปไทด์เร่งปฏิกิริยาขนาดเล็ก ไม่ใช่อินไซม์ทรงกลมที่พับตัวแบบสมัยใหม่ที่มีช่องแอคทีฟไซต์ลึก
ซินทีเทสและ tRNA แยกส่วนเป็นการปรับปรุงในภายหลัง
หากทั้งการเติมประจุเริ่มต้นและหน้าที่อะแดปเตอร์สามารถทำได้โดยไม่ต้องมีอินไซม์เฉพาะทาง อะมิโนแอซิล-tRNA ซินทีเทสและโมเลกุล tRNA อิสระก็กลายเป็น การควบคุมคุณภาพ องค์ประกอบมากกว่าข้อกำหนดเบื้องต้น พวกมันกระชับความสอดคล้องระหว่างโคดอนและอะมิโนแอซิดและเพิ่มความแม่นยำของการแปลรหัส ดังนั้นจึงเข้าใจได้ดีที่สุดว่าเป็นการปรับปรุงที่ปรากฏขึ้นเมื่อระบบที่เชื่อมโยงกันได้จำลองตัวเองและอยู่ภายใต้การคัดเลือกแล้ว — ไม่ใช่เงื่อนไขที่ทำให้การเชื่อมโยงเป็นไปได้ตั้งแต่แรก
รีพลิเคส: อินไซม์จำเป็นตัวแรก
การเชื่อมโยงเพียงอย่างเดียวไม่เพียงพอ ไม่ว่าวัฏจักรคล้ายการแปลรหัสจะงดงามเพียงใด มันก็หายไปพร้อมกับการตายของโมเลกุลของมัน เว้นแต่ข้อมูลที่เข้ารหัสมันจะถูกคัดลอกได้ นี่คือข้อโต้แย้งชี้ขาดของสไลด์: การจำลองคือสิ่งที่เปลี่ยนการเชื่อมโยงทางเคมีครั้งเดียวให้เป็นหน้าที่ที่ถ่ายทอดและคัดเลือกได้. รีพลิเคส RNA — โดยมีการสังเคราะห์ดีโนโวของ Qβ midivariant เป็นแบบจำลองเชิงทดลองของระบบ RNA น้อยที่สุดที่ศูนย์กลางอยู่ที่รีพลิเคสดังกล่าว — ให้ความสามารถนี้พอดี เมื่อการจำลองและการเร่งปฏิกิริยาเปปไทด์เชื่อมโยงกันเชิงหน้าที่ โปรตีนเชิงเอนไซม์ตัวแรกอย่างแท้จริงก็สามารถเกิดขึ้นและคงอยู่ได้
ขีดจำกัดความแม่นยำเสริมข้อสรุปเดียวกัน เครื่องมือแปลรหัสที่สมบูรณ์ต้องการองค์ประกอบจำนวนมากที่ปฏิสัมพันธ์กันอย่างแม่นยำ ที่อัตราความผิดพลาดที่คาดไว้ของรีพลิเคสยุคแรก เครื่องมือขนาดใหญ่เช่นนั้นไม่สามารถคงอยู่ได้เมื่อเทียบกับขีดจำกัดความผิดพลาด ในขณะที่ quasi-species ของ RNA สั้น ๆ ที่คัดลอกโดยรีพลิเคสสามารถอยู่ได้ แบบแผนรีพลิเคสก่อนแบบน้อยที่สุดจึงไม่ใช่การลดทอนเพื่อความสะดวก แต่เป็นผลโดยตรงจากขีดจำกัดความแม่นยำของยุคนั้น ซินทีเทส tRNA แยกส่วน และการแปลรหัสที่สมบูรณ์ปรากฏในภายหลังเป็นการปรับปรุงที่เพิ่มความแม่นยำซ้อนทับบนแกนกลางที่ถ่ายทอดทางพันธุกรรมได้แล้ว
ลำดับเวลาเซลล์น้อยที่สุด
เส้นทางจากซ้ายไปขวาที่แสดงการจำลอง RNA สาย RNA อเนกประสงค์ที่ทำหน้าที่ทั้งอะแดปเตอร์และเมสเซนเจอร์ สารตั้งต้นเปปไทด์บีตา-ชีตอย่างง่าย และรีพลิเคสตัวแรกที่เน้นว่าเป็นสิ่งจำเป็น ตามด้วยซินทีเทสและ tRNA แยกส่วนในภายหลัง และสุดท้ายเครื่องมือแปลรหัสที่สมบูรณ์ ประเด็นเชิงสาเหตุคือเรื่องของลำดับ: การเชื่อมโยงเชิงหน้าที่สามารถมาก่อนเครื่องมือที่สมบูรณ์ได้ แต่ไม่มีสิ่งใดในระบบถูกถ่ายทอดทางพันธุกรรมได้หากไม่มีรีพลิเคส