สไลด์ 69 รวบรวม หลักฐานทางอ้อมที่สอดคล้องกัน ว่า RNA สายเดียวสามารถทำหน้าที่พร้อมกันได้ทั้งเป็น ตัวปรับ — ตัวนำพาคล้าย tRNA ที่ส่งกรดอะมิโนให้กับสายโซ่ที่กำลังelongate — และเป็น ตัวนำสารพันธุกรรม — ลำดับคล้าย mRNA ที่สามารถอ่านได้ หากบทบาททั้งสองอยู่ร่วมในโมเลกุลเดียวได้ อุปสรรคระหว่างการจำลองแบบ RNA แบบไฮเปอร์ไซเคิลและการแปลรหัสในยุคเริ่มแรกจะลดลงอย่างมาก ทั้งกลุ่มตัวปรับที่แยกออกมาต่างหาก และในตอนเริ่มแรกสุด เอนไซม์ซินทีเทส ก็ไม่จำเป็นต้องถือกำเนิดขึ้นก่อนที่ข้อความจะถูกถอดรหัสได้
หลักฐานสี่สายที่สอดคล้องกัน
- ลำดับและการจัดเรียงโครงสร้างของ tRNA: หน้าที่ของตัวปรับและตัวนำสารพันธุกรรมสามารถอยู่ใน RNA วงศ์เดียวกันได้ — โมเลกุลเดียวทำหน้าที่ทั้งรับ/ส่งต่อกรดอะมิโนและบรรจุข้อมูลลำดับที่อ่านได้
- การสังเคราะห์แบบดีโนโวของ Qβ มิดิแวเรียนต์: RNA สามารถเพิ่มจำนวนได้โดยไม่ต้องมีเครื่องมือแปลรหัสอยู่ก่อน ดังนั้นโมเลกุล RNA ขนาดใหญ่เท่า tRNA ที่เพิ่มจำนวนได้อย่างเสถียรจึงเป็นไปได้ก่อนที่การแปลรหัสแบบซับซ้อนจะมีอยู่
- สารตั้งต้นเอนไซม์โครงสร้าง β-sheet อย่างง่าย: โปรตีนที่ทำหน้าที่ได้ในยุคแรกไม่จำเป็นต้องมีการพับที่ซับซ้อน เพปไทด์ขนาดเล็กที่สุดก็สามารถให้หน้าที่พื้นฐานได้โดยไม่ต้องมีเอนไซม์ที่พับสมบูรณ์
- ความยืดหยุ่นของโครงสร้าง tRNA (hf ↔ FH): บทบาทของตัวปรับและแม่แบบไม่ได้แยกออกเป็นกลุ่ม RNA ที่แตกต่างกันอย่างสมบูรณ์
การสลับ hf ↔ FH
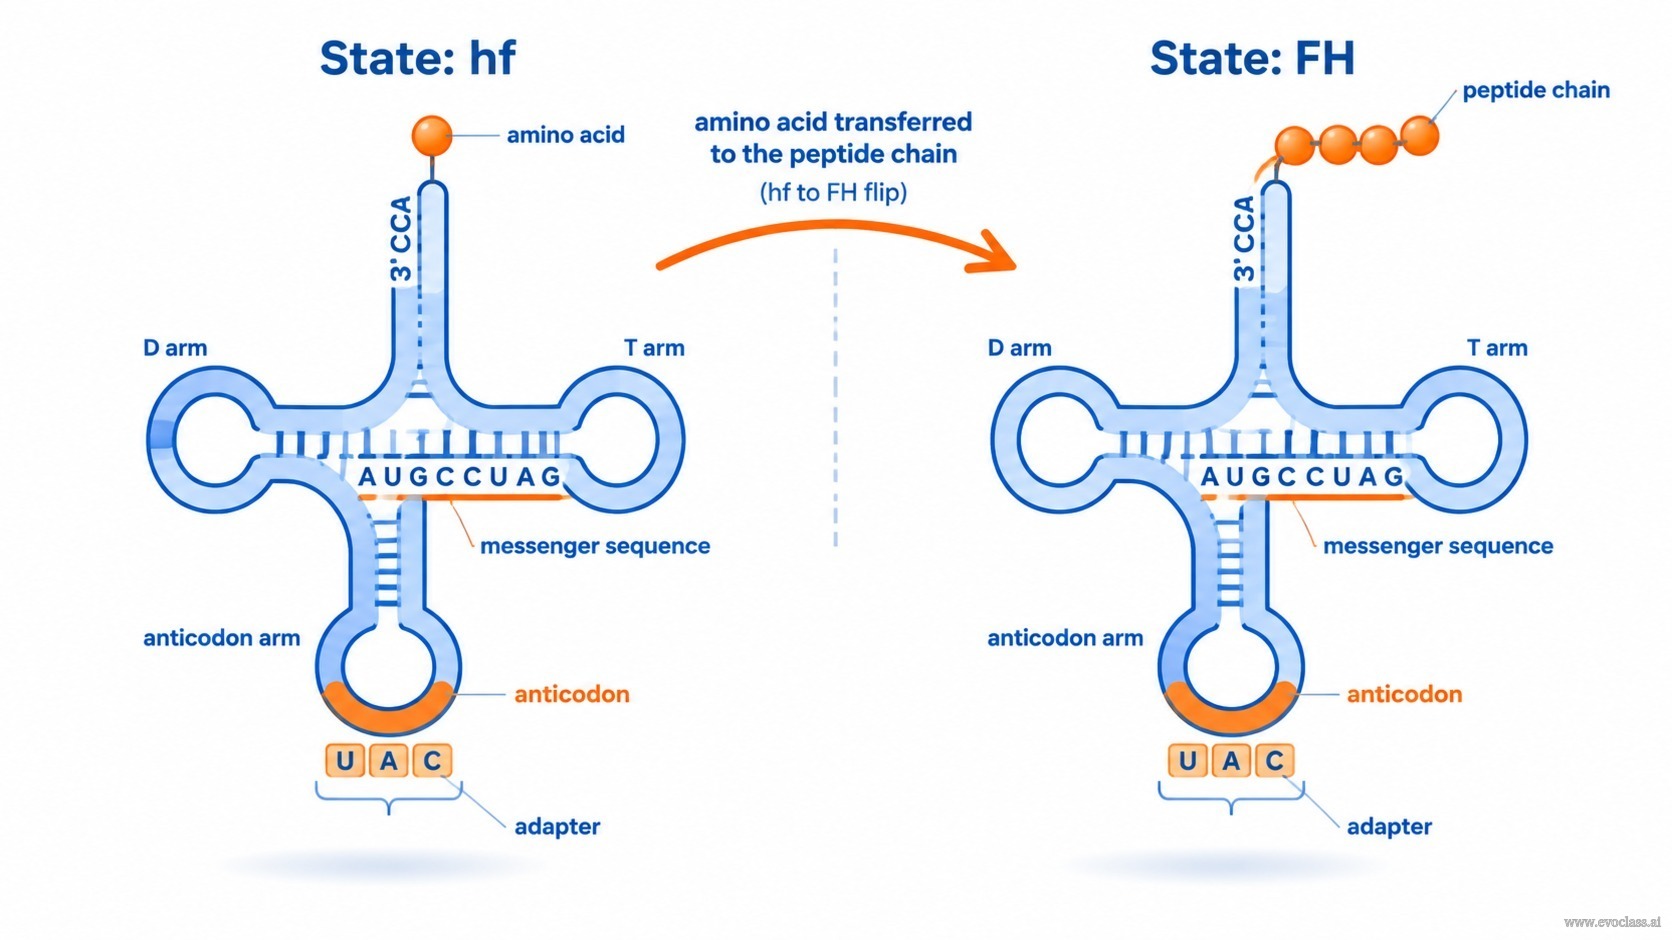
โครงแบบใดในสองแบบจะปรากฏอยู่จริงนั้น ขึ้นอยู่กับว่า tRNA นั้นจับอยู่กับกรดอะมิโนหรือสายเพปไทด์ เมื่อส่งกรดอะมิโนไปยังสายเพปไทด์ tRNA จะพลิกจาก hf ไปเป็น FH โครงแบบ (เทียบรูปที่ 49) แบบจำลองนี้อธิบายได้ดีว่า ในเมื่อไม่มีเครื่องมือแปลรหัสที่ซับซ้อน ข้อความจะถูกอ่านออกมาได้อย่างไร: สายเดียวกันที่ส่งกรดอะมิโนก็เผยลำดับที่อ่านได้ด้วย
คำถามโต้แย้งที่ต้องให้ความสำคัญ
จุดกำเนิดของการแปลรหัสจะจินตนาการได้อย่างไร เมื่อมีโมเลกุล RNA ที่เพิ่มจำนวนได้อย่างเสถียรขนาดเท่า tRNA และมีข้อกำหนดเบื้องต้นสำหรับการสังเคราะห์โปรตีนในรูปแบบพื้นฐานจากกรดอะมิโนที่พบได้ทั่วไปเพียงไม่กี่ชนิด คำถามนี้สามารถทำให้คมขึ้นเป็นข้อโต้แย้งได้ว่า: "คำถามนี้อาจตั้งขึ้นในอีกมุมหนึ่งได้ว่า: ทำไมไม่ใช้ตัวปรับที่เป็นโอลิโกนิวคลีโอไทด์ขนาดเล็ก?" แบบจำลองที่ทำหน้าที่คู่ตอบว่า โมเลกุลต้องยาวและมีโครงสร้างเพียงพอที่จะรองรับทั้งการจดจำของตัวปรับและความสามารถในการอ่านของตัวนำสารพันธุกรรม ดังนั้นโอลิโกนิวคลีโอไทด์ขนาดจิ๋วจึงไม่เพียงพอ
การสลับ tRNA จาก hf เป็น FH
tRNA สายเดียวที่แสดงในสองสถานะ: hf เมื่อมันพากรดอะมิโนอยู่ และ FH หลังจากกรดอะมิโนนั้นถูกส่งต่อไปยังสายเพปไทด์ เนื่องจากสายเดียวกันยังเผยลำดับที่อ่านได้ บทบาทของตัวปรับ (การจดจำแอนติโคดอน) และบทบาทของตัวนำสารพันธุกรรม (แม่แบบที่อ่านได้) จึงไม่ได้แยกออกเป็นกลุ่ม RNA ที่แตกต่างกัน — ซึ่งเป็นเหตุผลที่ข้อความสามารถถูกอ่านออกมาได้โดยไม่ต้องมีเครื่องมือแปลรหัสที่ซับซ้อน