Интеграция конкурирующих молекулярных репликаторов сталкивается с фундаментальным ограничением: порогом ошибок. Единая длинная репликативная единица — полученная, например, лигированием нескольких генов в один геном — накапливает слишком много мутаций за цикл репликации. Как только частота мутаций превышает порог, мастер-последовательность теряется, и специфическая информация, закодированная в этой единице, деградирует. Следовательно, интеграции нельзя достичь просто созданием одной более длинной молекулы; интегрированная единица должна оставаться селектируемой на фоне собственного распределения мутантов.
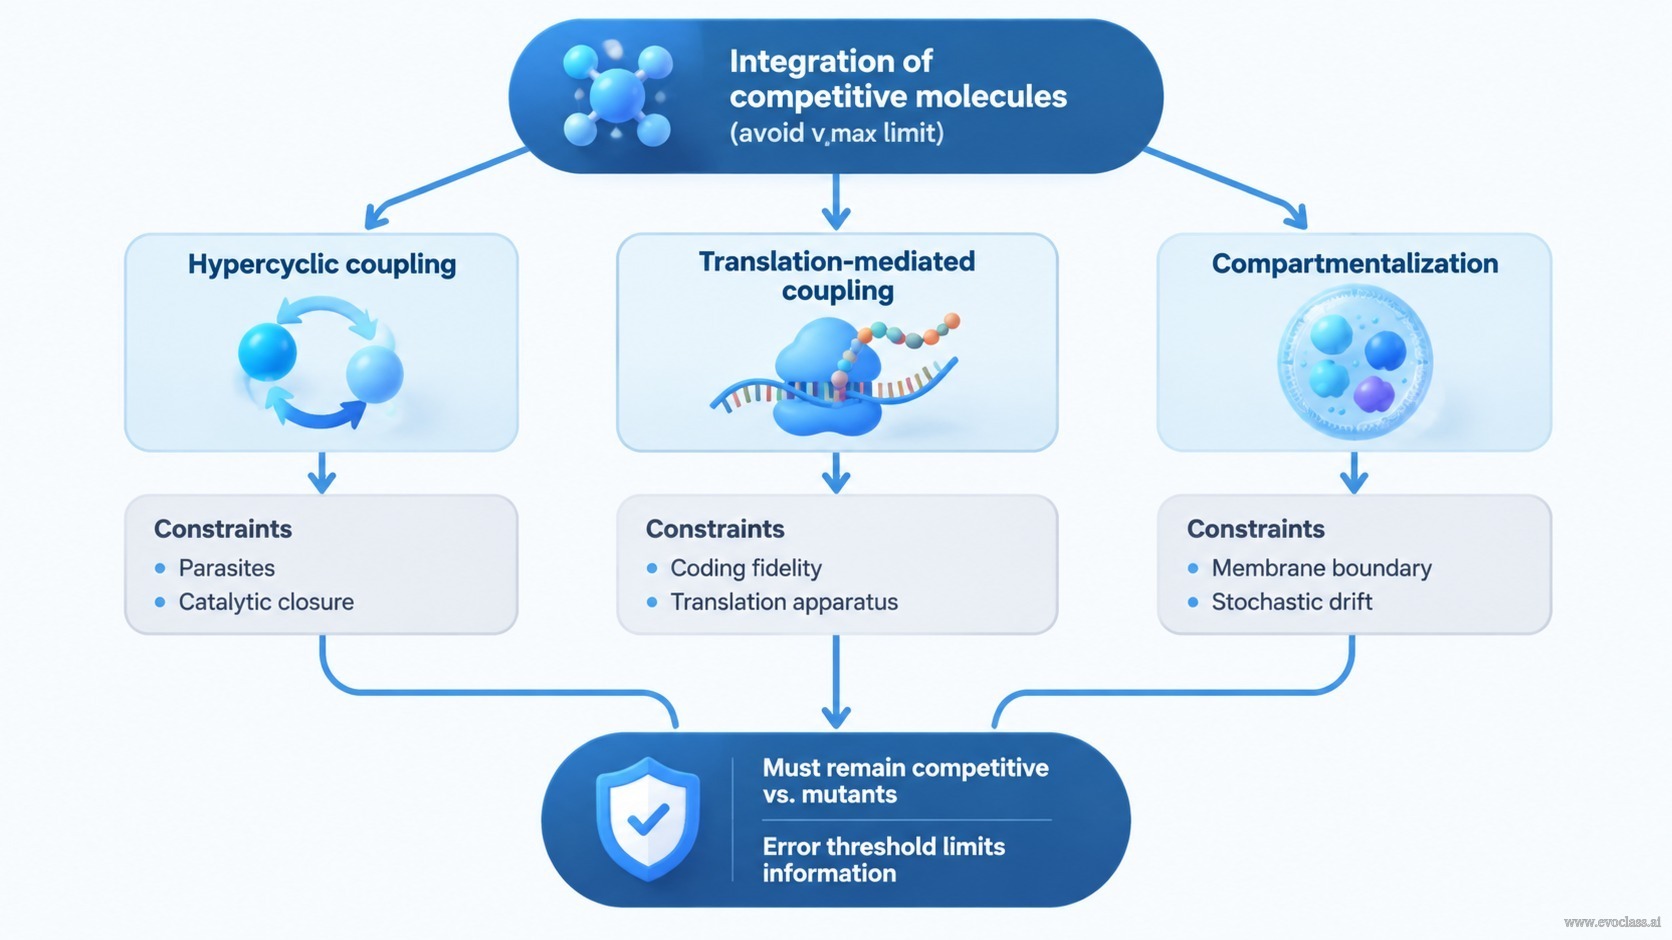
Предложены три альтернативных пути интеграции конкурирующих молекул без нарушения порогового соотношения для
- Гиперциклическое сопряжение: гены связаны через замкнутый каталитический цикл, поэтому репликация каждого гена зависит от продуктов остальных. Это создаёт единицу отбора на уровне гиперцикла, но остаётся уязвимым к паразитическим мутантам и требует каталитического замыкания.
- Сопряжение, опосредованное трансляцией: гены кодируют функционально активные белки (например, репликазы или синтетазы), которые катализируют репликацию или трансляцию. Это допускает разделение труда и может интегрировать больше информации, чем единый РНК-геном, но требует кодирующего аппарата и сталкивается с ограничениями точности.
- Компартментализация: кооперативные гены заключены в общий компартмент (протоклетку), поэтому отбор действует на компартмент в целом. Это может стабилизировать интеграцию и ограничить эксплуатацию паразитами, но вводит поддержание границы, стохастические эффекты и ограничения согласованной репликации.
Эти пути не являются взаимоисключающими. Ранняя эволюция могла сочетать гиперциклическую организацию, трансляцию и компартментализацию для достижения интегрированных геномов. Общее ограничение состоит в том, что каждый путь должен оставаться в пределах порога ошибок и управлять мутационной нагрузкой: интеграция — это селективная проблема, а не просто физическая ассоциация.
Три пути к интеграции
На диаграмме показана центральная проблема интеграции, разделяющаяся на гиперциклическое сопряжение, сопряжение, опосредованное трансляцией, и компартментализацию. Стрелки от каждого пути ведут к общим ограничениям: оставаться конкурентоспособным против мутантов и не превышать порог ошибок.