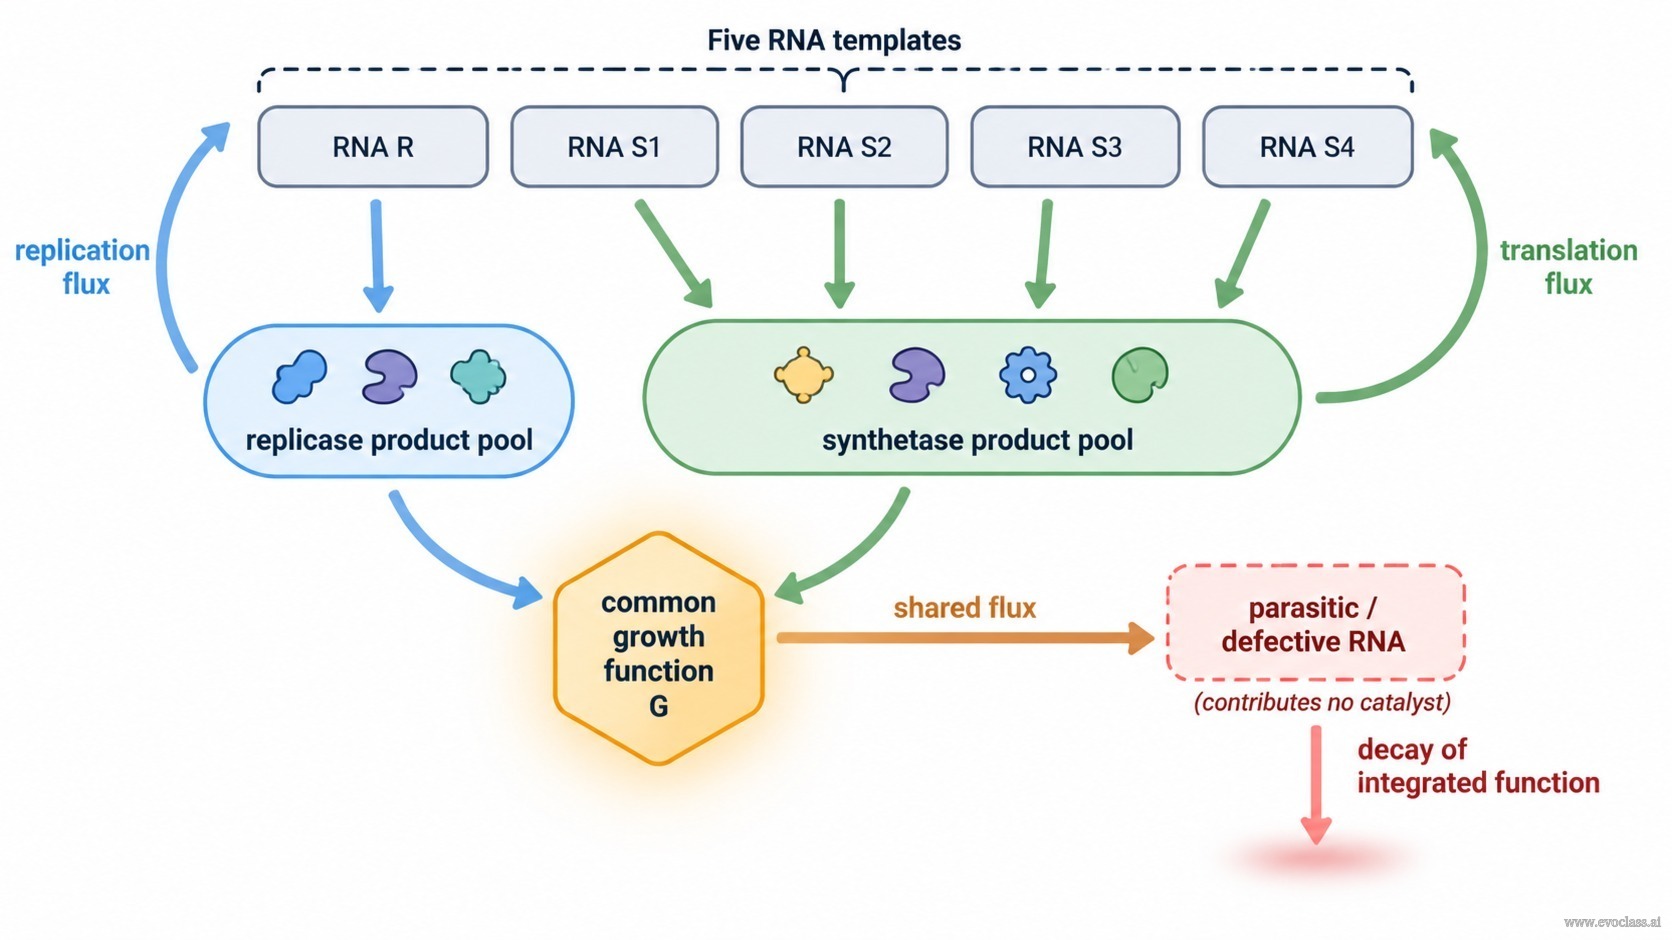
Порог минимальная схема репликаза–синтетаза — это наименьший трансляционно-связанный гиперцикл, который можно записать как конкретное молекулярное предложение: набор цепей РНК, в котором один матричный шаблон (R) кодирует репликазу, а четыре шаблона (S1–S4) кодируют синтетазы. Это намеренно не единичная самореплицирующаяся РНК. Вместо этого схема представляет собой консорциум: одна и та же популяция РНК поставляет как матрицы для репликации, так и матрицы для трансляции.
Функциональная связь: продукты репликазы копируют все пять цепей РНК, а продукты синтетазы обеспечивают трансляцию тех же пяти цепей. Поскольку одна и та же популяция служит и матрицей, и каталитическим продуктом, репликация и трансляция взаимно связаны, а не являются отдельными подсистемами. Эта связь — архитектурное ядро минимального гиперцикла.
Редукция общего роста: когда катализаторы действуют на весь набор, отдельные члены репликации и трансляции не являются личными для цепи, кодирующей катализатор. Они становятся членами общего пула. Математически связанная система сводится к единой общей функции роста G для всех цепей. Чистый рост каждой цепи можно записать как коллективный вклад плюс член относительного состава, но селективное вознаграждение за производство катализатора размывается, поскольку каждый член черпает из одного и того же потока роста.
Механизм распада: поскольку все члены черпают из одного потока роста, мутант, который снижает или исключает производство катализатора, всё равно получает общую выгоду. Если такой вариант реплицируется быстрее — например, потому что его РНК короче, — он может увеличивать относительную частоту, не внося активности репликазы или синтетазы. Это разбавляет функциональные катализаторы и позволяет накапливаться паразитическим или дегенеративным цепям. Поэтому одной минимальной схемы недостаточно для устойчивой дарвиновской интеграции.
Следствие для стабильности: чтобы подавить распад, требуется дополнительная организация. Компартментализация, пространственная структура или гиперциклическая замкнутость могут сделать выживание цепи зависимым от её собственного каталитического вклада путём совместной локализации катализаторов, матриц и продуктов. Такая организация поддерживает стехиометрический баланс и предотвращает захват общего потока роста непродуктивными вариантами.
Аналитический нюанс: в исходном изложении (страницы 66–76) редукция общего роста выявляется через аффинное преобразование переменных популяции. Преобразование отделяет коллективную моду роста от мод относительного состава. Общая мода роста описывает расширение всего ансамбля, а остальные моды описывают изменение состава — включая вторжение паразитических или дефектных цепей. Это изменение координат проясняет, почему общий рост не может избирательно вознаграждать каталитический вклад каждого компонента.
Минимальная схема репликазы и синтетазы
Пять матриц РНК — R, кодирующая репликазу, и S 1 –S 4, кодирующие синтетазы, — питают пулы продуктов репликазы и синтетазы. Оба пула сходятся к общей функции роста G. Пунктирная паразитическая РНК получает тот же поток, но не вносит катализатор, вызывая распад интегрированной функции.