Молекулярная информация не сохраняется автоматически. Репликация, мутация, каталитическое сопряжение и селективное преимущество — это специфические свойства конкретных химических систем, а не универсальные атрибуты произвольной материи. Как только реплицирующаяся система возникает, её способность сохранять осмысленную последовательность зависит от количественного баланса: ошибки, вносимые при копировании, должны компенсироваться селективным преимуществом, которое осмысленная последовательность имеет перед своим облаком мутантов.
Для мастер-последовательности длиной vₘ, средней точности на символ q̄ₘ и селективного преимущества σₘ над средним мутантом условие сохранения имеет вид
q̄ₘvₘ · σₘ > 1
Здесь q̄ₘvₘ — это вероятность того, что вся копия будет безошибочной, и она экспоненциально убывает с ростом vₘ. Множитель σₘ — это селективный запас, который допускает ошибочные копии, всё же сохраняемые в популяции. Порог ошибок — это граница q̄ₘvₘ · σₘ = 1.
Как читать соотношение порога
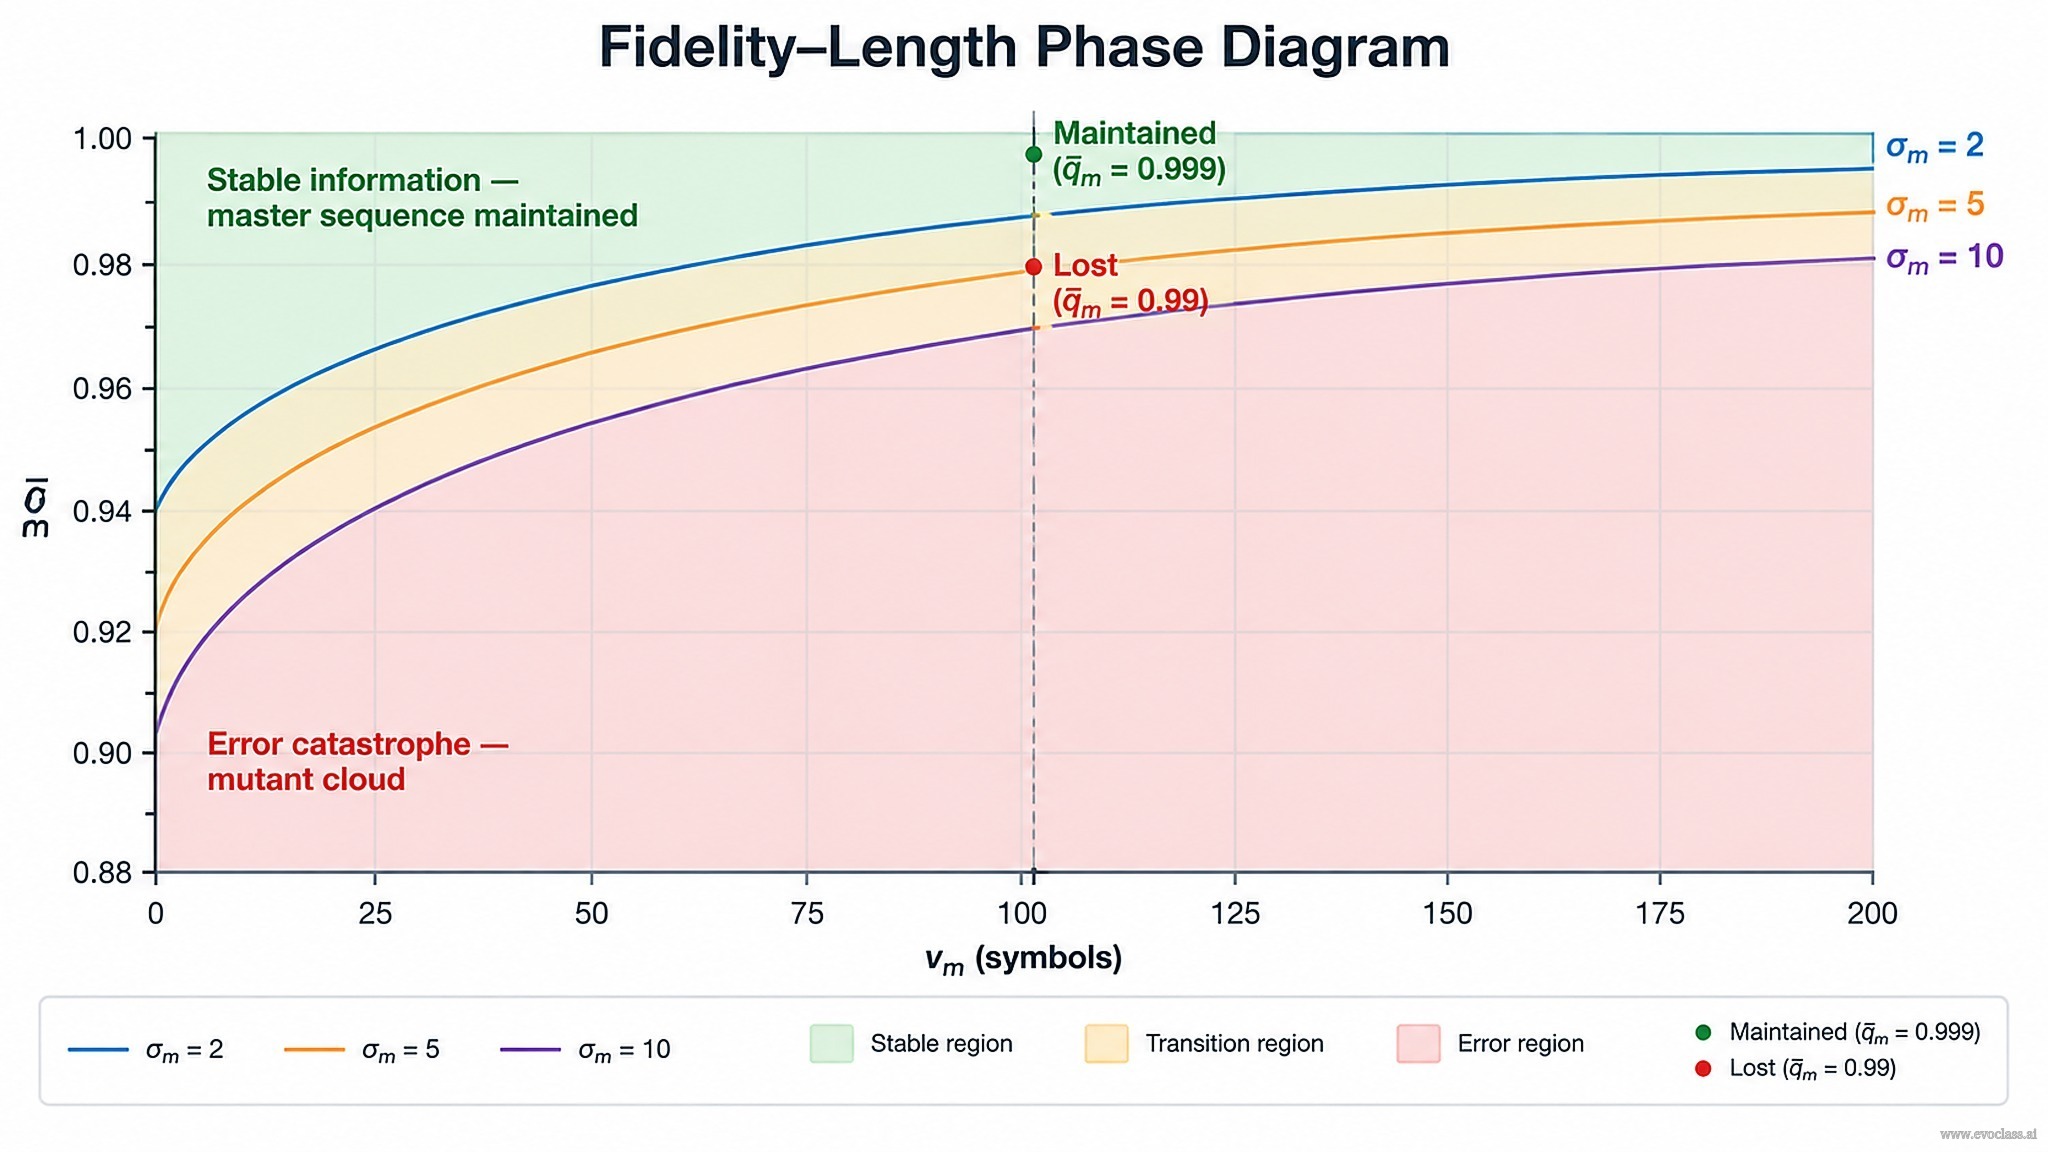
После преобразования граница принимает вид q̄ₘ > σₘ−1/vₘ. Таким образом, точность, длина и селективное преимущество совместно определяют результат: ни один из них нельзя выбрать независимо от двух других.
- Средняя точность q̄ₘ — средняя вероятность правильного копирования одного символа.
- Длина последовательности vₘ — число символов, которые все должны быть скопированы правильно.
- Селективное преимущество σₘ — насколько быстрее мастер-последовательность реплицируется по сравнению со средним членом своего облака мутантов.
Выше и ниже порога
Выше порога отбор локализует популяцию вокруг осмысленной последовательности: поддерживается устойчивый пик квазивида, и большинство особей по-прежнему происходят от мастер-последовательности. Ниже порога мастер-последовательность уже неотличима от своих мутантов; популяция делокализуется в широкое распределение мутантов, и закодированная информация утрачивается — наступает ошибка-катастрофа.
Этот переход подобен фазовому переходу. Он разделяет упорядоченное состояние, несущее информацию, и неупорядоченное облако мутантов, а не описывает плавное убывание.
Почему длина и преимущество связаны компромиссом
Поскольку q̄ₘvₘ экспоненциально зависит от vₘ, более длинные последовательности требуют экспоненциально более высокой точности. Большее σₘ, напротив, допускает большую vₘ или меньшую q̄ₘ. Этот компромисс ограничивает длину ранних репликаторов: при реалистичной пребиотической точности могли поддерживаться лишь короткие последовательности, что мотивирует организацию более высокого уровня, например гиперциклы, в которых несколько коротких репликаторов объединяются в совместно отбираемую сеть.
Пример расчёта
Возьмём vₘ = 100 и σₘ = 2. При q̄ₘ = 0.99 q̄ₘvₘ ≈ 0.366 и σₘ · q̄ₘvₘ ≈
Допущения и ограничения
Классический порог предполагает большие популяции, постоянную организацию и ландшафт приспособленности с одним пиком. Конечные популяции, нейтральность, компенсаторные мутации и изрезанные ландшафты размывают переход, но не устраняют лежащего в его основе ограничения.
Фазовая диаграмма «точность – длина»
Пороговые кривые q̄ₘ = σₘ^(−1/vₘ) для σₘ = 2, 5 и 10 в зависимости от длины последовательности vₘ. Выше кривой отбор локализует популяцию на мастер-последовательности; ниже неё популяция делокализуется в широкое облако мутантов. Большее σₘ снижает точность, необходимую при данной длине, а две отмеченные точки при vₘ = 100 показывают, как изменение q̄ₘ с 0.99 (утрачена) на 0.999 (сохраняется) пересекает границу.