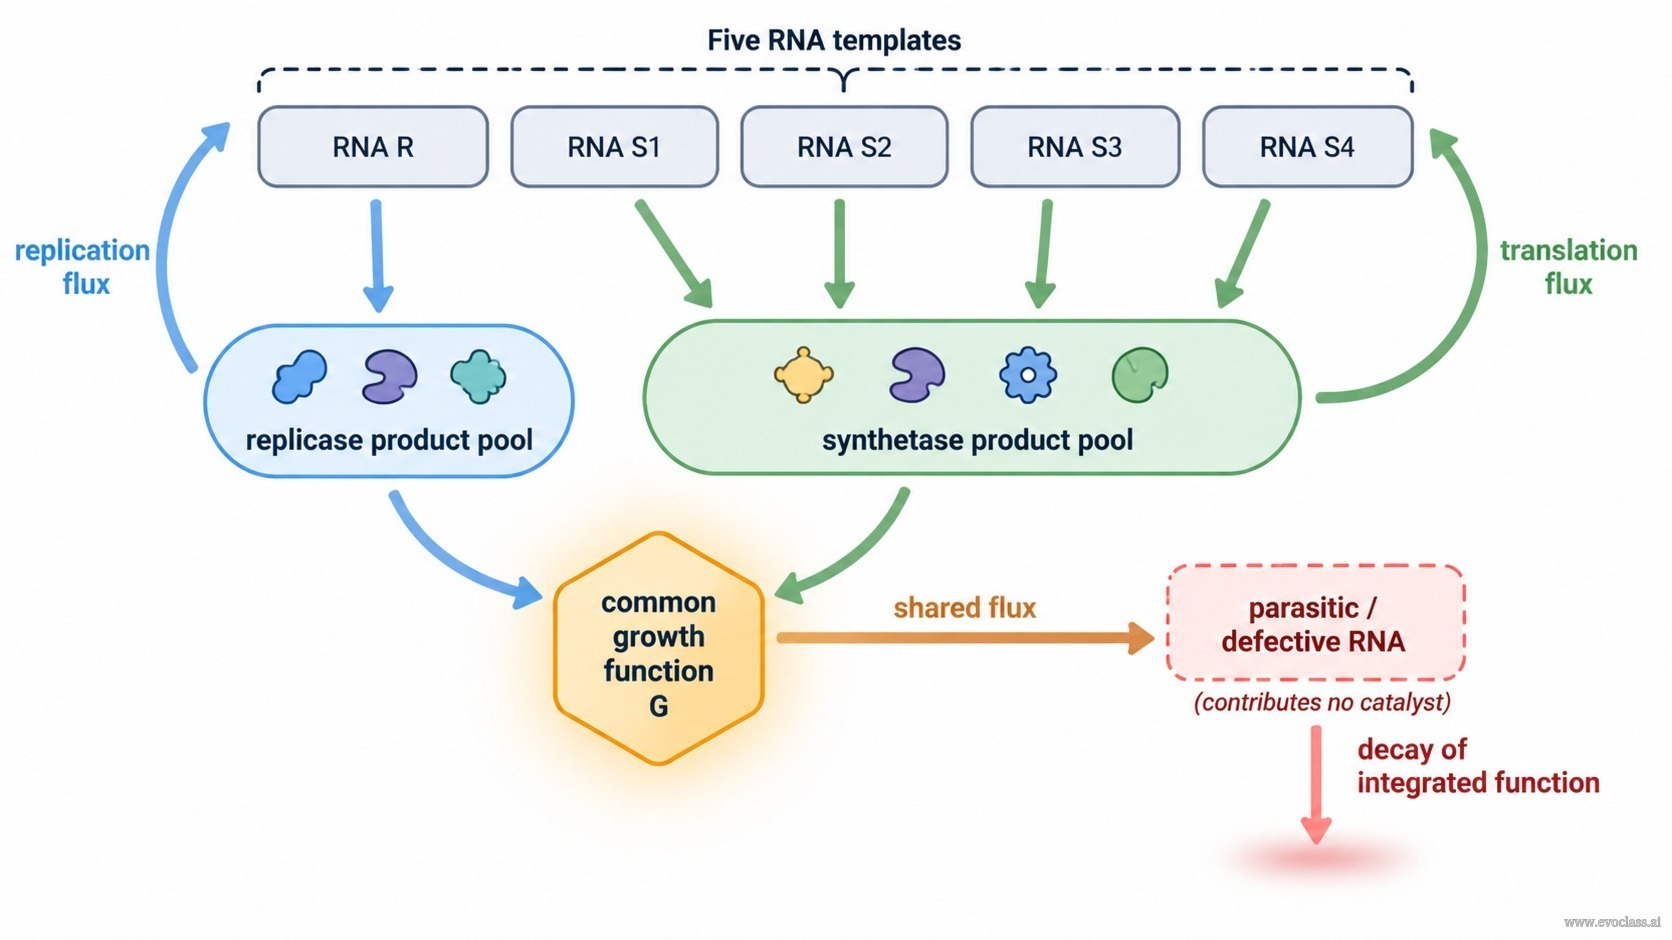
오류 임계값은 최소 복제효소–합성효소 체계 는 구체적인 분자 제안으로 작성될 수 있는 가장 작은 번역 결합 초순환이다: 하나의 주형(R)이 복제효소를 암호화하고 네 개의 주형(S1–S4)이 합성효소를 암호화하는 RNA 가닥 집합. 이는 의도적으로 단일 자기 복제 RNA가 아니다. 대신 이 체계는 컨소시엄이다: 동일한 RNA 집단이 복제용 주형과 번역용 메신저를 모두 제공한다.
기능적 연결: 복제효소 생성물은 다섯 개 RNA 가닥 모두를 복제하고, 합성효소 생성물은 동일한 다섯 가닥의 번역을 가능하게 한다. 동일한 집단이 주형이자 촉매 생성물이기 때문에 복제와 번역은 분리된 하위 시스템이 아니라 상호 결합되어 있다. 이 결합이 최소 초순환의 구조적 핵심이다.
공유 성장 환원: 촉매가 전체 집합에 작용할 때, 개별 복제 및 번역 항은 촉매를 암호화하는 가닥에 사적으로 귀속되지 않는다. 이들은 공유 풀 항이 된다. 수학적으로 결합 시스템은 모든 가닥에 대한 단일 공통 성장 함수 G 로 환원된다. 각 가닥의 순 성장은 집단적 기여와 상대 조성 항의 합으로 쓸 수 있지만, 촉매를 생산하는 것에 대한 선택적 보상은 모든 구성원이 동일한 성장 플럭스를 나누어 쓰기 때문에 희석된다.
붕괴 기제: 모든 구성원이 동일한 성장 플럭스에 의존하기 때문에, 촉매 생산을 줄이거나 생략한 돌연변이도 공유된 이익을 여전히 받는다. 만약 그러한 변이체가 더 빠르게 복제된다면—예를 들어 RNA가 더 짧기 때문에—복제효소나 합성효소 활성에 기여하지 않고도 상대 빈도를 높일 수 있다. 이는 기능성 촉매를 희석시키고 기생적이거나 퇴화된 가닥이 축적되게 한다. 따라서 최소 도식만으로는 견고한 다윈적 통합에 충분하지 않다.
안정성 함의: 붕괴를 억제하려면 추가적인 조직화가 필요하다. 구획화, 공간 구조, 또는 초순환적 폐쇄는 촉매, 주형, 산물을 함께 국소화함으로써 가닥의 생존을 자신의 촉매 기여에 의존하게 만들 수 있다. 그러한 조직화는 화학량론적 균형을 유지하고 공통 성장 플럭스가 비생산적 변이체에 의해 포획되는 것을 막는다.
분석적 미묘함: 원 출처(66–76쪽)에서 공유 성장 감소는 개체군 변수의 아핀 변환을 통해 드러난다. 이 변환은 집단적 성장 모드와 상대 조성 모드를 분리한다. 공통 성장 모드는 전체 집합의 확장을 기술하는 반면, 나머지 모드는 조성 변화—기생적이거나 결함 있는 가닥의 침입 포함—를 기술한다. 이 좌표 변환은 공유 성장이 각 구성원의 촉매 기여를 선택적으로 보상할 수 없는 이유를 명확히 한다.
최소 복제효소 및 합성효소 체계
다섯 개의 RNA 주형—복제효소를 암호화하는 R과 합성효소를 암호화하는 S1–S4—이 복제효소 및 합성효소 산물 풀에 공급된다. 두 풀은 공통 성장 함수 G로 수렴한다. 점선으로 표시된 기생 RNA는 동일한 플럭스를 받지만 촉매를 기여하지 않아 통합된 기능의 붕괴를 초래한다.