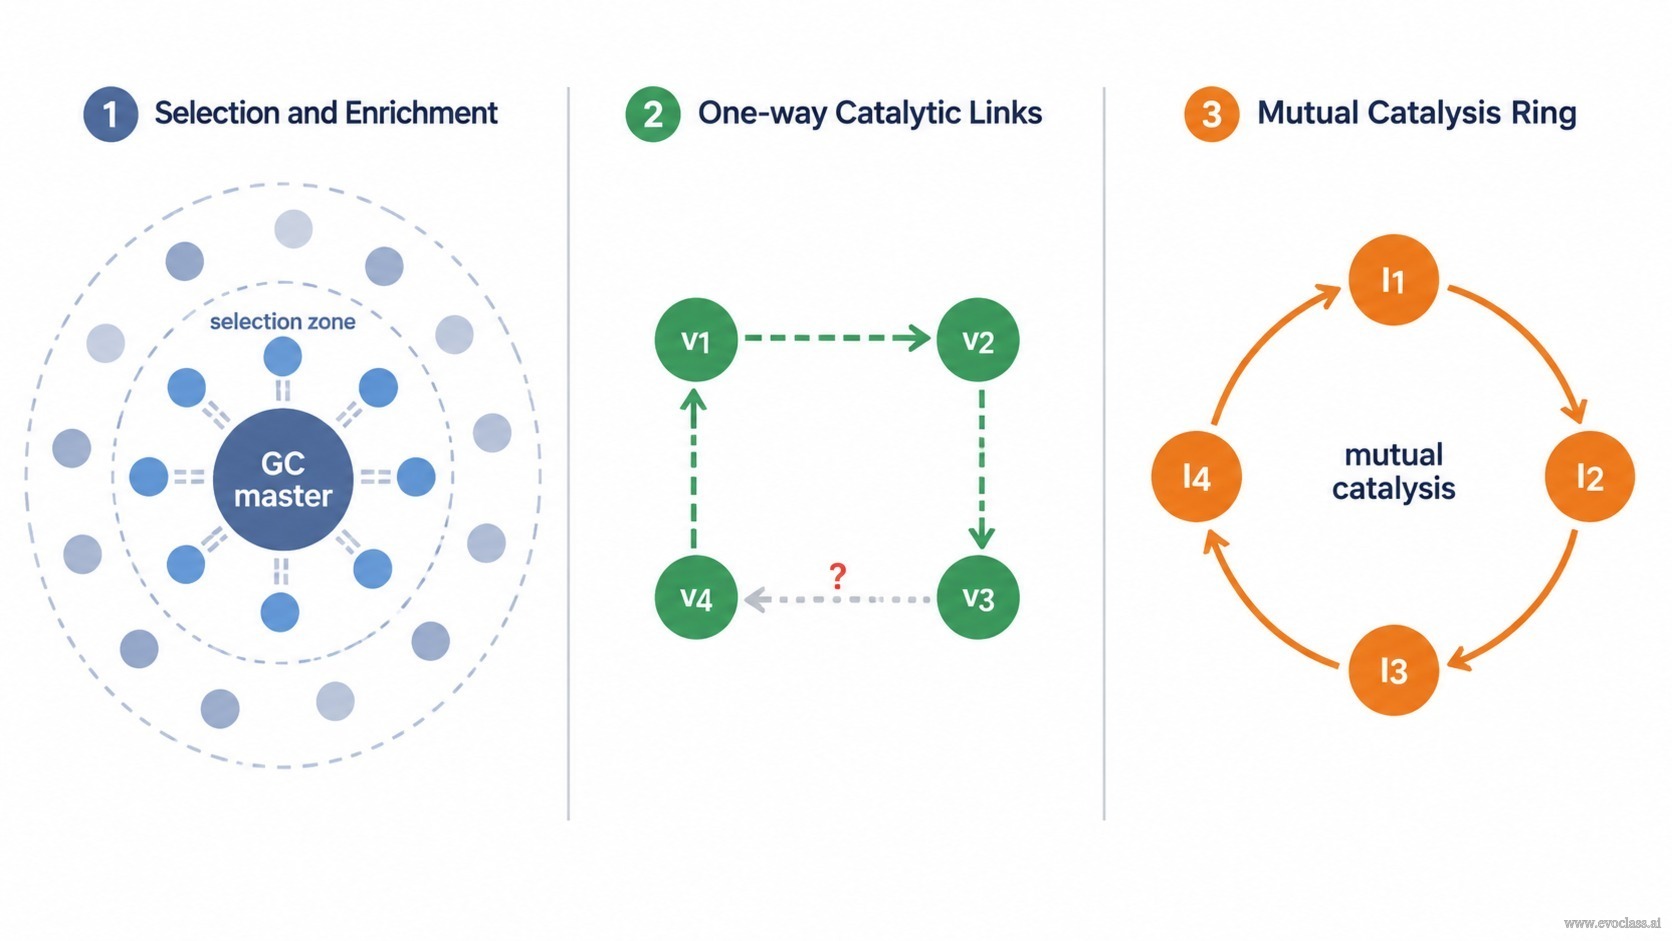
A ハイパーサイクル とは、互いの複製を触媒する複製子の閉じた集合である。サイクルは 相互 の触媒作用によって複数の異なる配列の間で定義されるため、単一のテンプレートコピーから核形成することはできない。1つの分子はサイクル全体の機能を含んでおらず、その最初のコピーにはループを閉じるための触媒パートナーが存在しない。したがってハイパーサイクル的組織は突然現れることはできず、集団のレベルで徐々に組み立てられなければならず、その組み立てに最も妥当な揺りかごはGCリッチな準種である。
なぜ1つのテンプレートではサイクルを開始できないのか
自己触媒的複製子は自己充足的である。自身の複製を鋳型とする単一の鎖は、1つの分子から指数関数的に増殖する。なぜなら分子とその産物は同じ機能を担うからである。ハイパーサイクルはこの種のものではない。その定義的性質は 触媒的支援の閉じたループ であり、メンバーiがメンバーjの複製を促進し、jがkを促進し、以下同様にループがiに戻るまで続く。いずれかのメンバーを取り除けば、残りのメンバーはもはやそれを再生産できない。したがって、いずれか1つのメンバーの最初のコピーは行き止まりである。相補的なパートナーがなく、それを優先的に増幅する閉じた触媒サイクルも存在しない。
GCリッチな準種が原材料を供給する
準種とは単一の配列ではなく、支配的なマスター様配列の周囲に分布する、変異的に連結された関連配列の雲である。GCリッチなプールでは、この雲は異常に豊富に蓄えられている。G–C対が1つ増えるごとに3本目の水素結合が寄与するため、GCリッチなステムはより高い温度で融解し、より確実に折りたたまれ、二次構造が崩壊するまでにより多くの点変異に耐える。したがってリザーバーは、核形成問題が同時に必要とする2つのものを兼ね備えている。すなわち、ループ、ステム、表面形状が変化した変異体の高い局所的多様性と、個々の変異体が選択による試練を受けるのに十分な長さ機能し続けるだけの構造的安定性である。
変異が結合を探索し、選択がそれを保持する
実際に相互作用の空間を探索するのは変異的探索である。点置換はヘアピンを再形成し、新しい結合表面を露出させ、あるいは金属イオン依存性の触媒中心を動員して、弱い結合係数
準種的組織からハイパーサイクル的組織へ
リンクが蓄積するにつれて、変異体の分布は形を変える。多様性はもはや単一のマスター配列の周囲に広がるのではなく、相互触媒的なテンプレートの小さな部分集合へと凝縮し、環の閉鎖は、ネットワークが単に開いたり分岐したりするのではなく閉じるのに十分なリンクが存在して初めて起こる。閉鎖前は、その集合体はいくつかの相関した変異体を持つ準種として振る舞う。閉鎖後は、増殖は協同的かつ超加法的である。サイクルは1つの単位として増殖し、各メンバーが次を養うため、結合した集合は同じ単量体とレプリカーゼをめぐって競合する孤立した準種を凌駕して増殖できる。これが、あらかじめ形成された多遺伝子ゲノムなしにハイパーサイクルが出現しうる仕組みである。すなわち、GCリッチなリザーバーにすでに存在する変異遺伝子の動員と統合による。2員の場合の基礎的な不動点解析も、速度係数の形で同じ点を示す。そのペアが競争的排除、一方のメンバーの選択、安定なハイパーサイクル的共存のいずれで終わるかは、自己強化と相互強化の相対的な大きさのみに依存し、その基準は3員やn員のサイクルにも一般化される。
経路が失敗するとき
- 複製の忠実度 はエラー閾値を上回っていなければならない。変異率が高すぎると、リザーバーは拡散した雲へと溶解し、どの変異体もリンクを確立するのに十分な長さ存続しない。
- 機能的な適合性 が重要である。メンバーは互いの折りたたみや触媒作用を破壊的に妨害してはならない。さもなければ蓄積するリンクは強化ではなく相殺してしまう。
- 寄生体の負荷 は低く保たれなければならない。出現しつつあるサイクルのおかげで効率的に複製されるが、何も触媒で返さない利己的なテンプレートは、共有資源を枯渇させ、ネットワークが閉じる前にそれを不安定化させうる。
計算例。 GCリッチなRNAプールでは、支配的なGGC/GCC様配列とその変異体が準種を形成する。ある変異体が隣接する配列の複製を弱く助けることがあり、選択は両方のパートナーを保持する。なぜならそれらの共同の収量がどちらか単独で達成するものを上回るからである。さらなる変異が相互の助けを生み出し、欠けていた枝が埋められ、2員以上のサイクルが閉じる。ひとたび閉じれば、ハイパーサイクル的増殖はそれを生み出した孤立した準種を凌駕する。
GCリッチな準種からの創発
3つの段階を左から右へ読み取る。第一に、GCリッチなマスター配列が変異の雲の中心にあり、内側の選択ゾーンが、安定なGC塩基対が折りたたまれた構造を保護する間に徐々に濃縮される変異体を示している。第二に、生き残った変異体は弱い一方向性の触媒リンクで結ばれ、ネットワークがまだ閉じていないため1つの接続は点線のままである。第三に、それらのリンクは相互的になり、ネットワークは各メンバーが次を触媒するハイパーサイクルの環へと閉じ、その結果、集合全体が孤立した準種を凌駕して増殖できる。