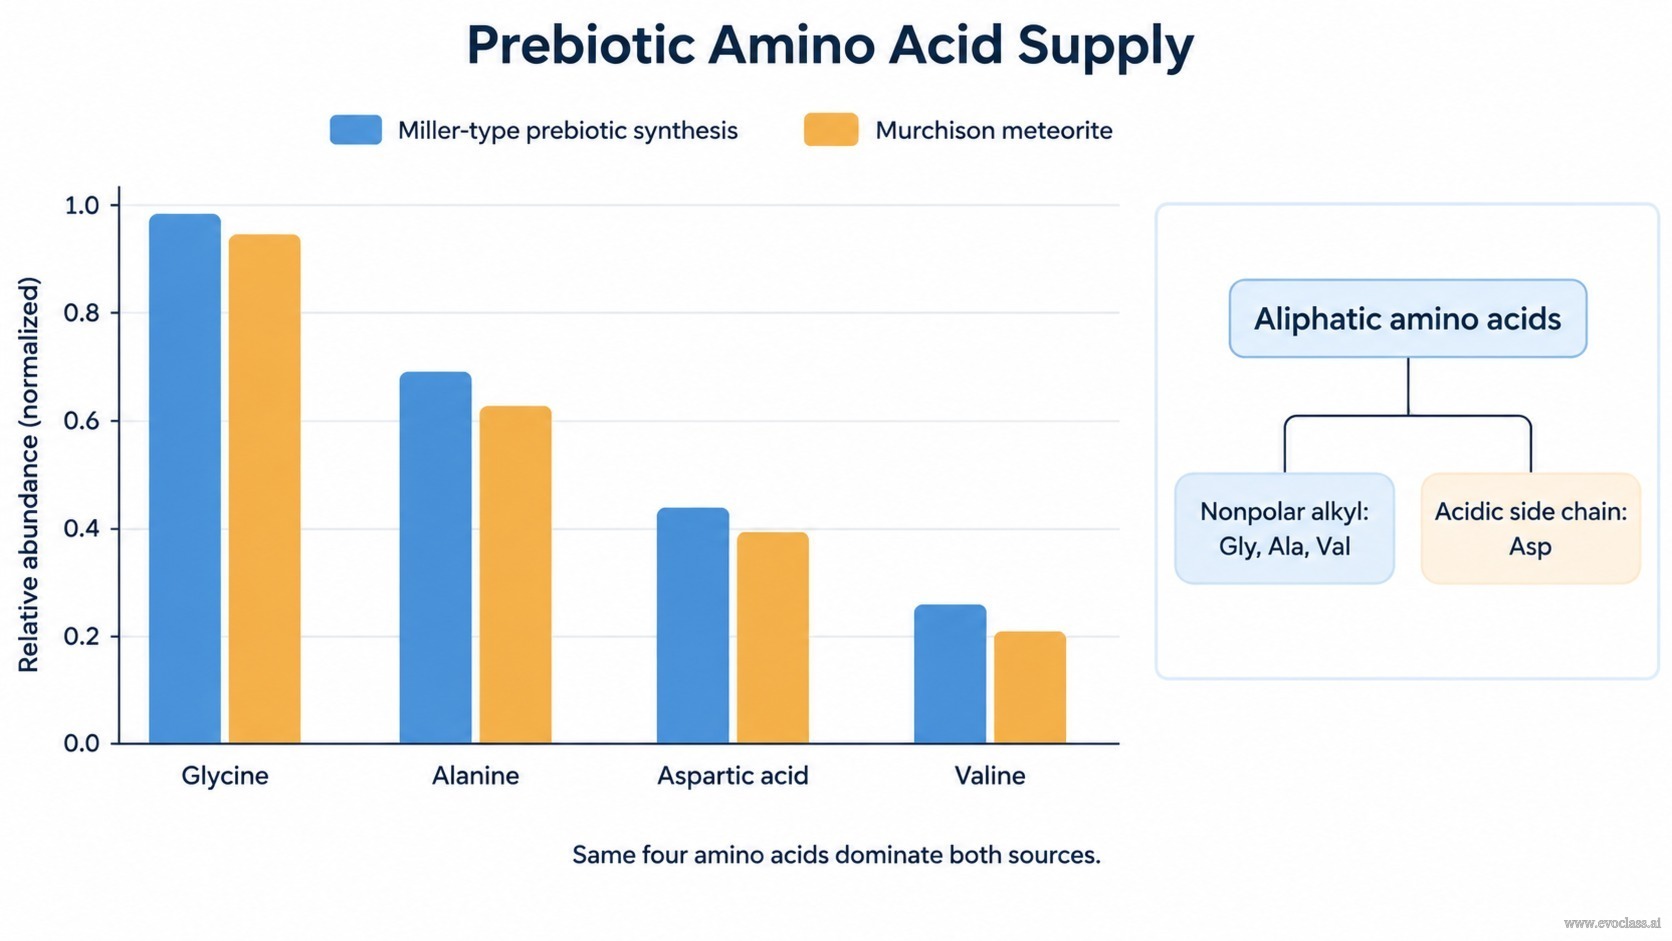
その 原始的なアミノ酸の目録 は、現代生物学が用いるアミノ酸の無作為な部分集合ではなかった。2つの独立した証拠系列が同じ短いリストに収束する: グリシン、アラニン、アスパラギン酸、バリン は、シミュレートされた前生物化学と、マーチソンのような炭素質コンドライトのアミノ酸含有量の両方で優勢である。これらの分子は小さく、構造的に単純で、酵素なしで形成できるため、最初の翻訳装置にとって最も妥当な基質である。
脂肪族の系統樹
脂肪族アミノ酸の系統樹は、初期翻訳に関連するアミノ酸を、 側鎖の化学的性質と前生物的利用可能性によって整理するのであり、後にコドンが割り当てられた順序によるのではない。グリシンは水素より大きなものを持たない。アラニンとバリンは短い非極性アルキル鎖を持つ。アスパラギン酸は短い酸性のカルボキシル基を持つ鎖を持つ。4つすべてが構造スペクトルの単純な端に位置し、いずれも前生物的な混合物に現れるために専用の生合成経路を必要としない。
2つの独立した証拠系列
- ミラー型前生物合成。 還元性ガス混合物への火花放電実験では、グリシンとアラニンが最も多く生成され、アスパラギン酸とバリンがそれに続く。この順位は、各分子が単純な前駆体からどれだけ容易に組み立てられるかを反映している。
- マーチソン隕石。 この炭素質コンドライトの抽出物には同じ優勢なアミノ酸が含まれており、これらの分子が地球外でも非生物的に生成され、地球外からの供給が地球上の目録を補った可能性を示す。
論拠を支えるのはこの収束である。実験室での合成と隕石試料というまったく異なる2つの物理的環境が同じ4つのアミノ酸を選び出すとき、そのパターンは偶然や汚染よりも非生物的化学を反映している可能性がはるかに高い。
豊富さが重要な理由:基質制限された出発点
最初の翻訳装置は 基質制限されていただろう。多量に生成または供給されるアミノ酸ははるかに頻繁に遭遇するため、長い酵素触媒経路に依存するまれな分子よりも、初期のアダプター鎖やメッセンジャー鎖に動員される可能性が高い。したがって豊富さは利用可能性の代理指標であり、利用可能性は動員の前提条件である。
証拠が制約するもの — そして決定しないもの
環境からの供給 制約する 候補プールを制約するが、 決定する コドン割り当ての順序を決定するわけではない。存在量の順序であるグリシン > アラニン > アスパラギン酸 > バリンと最初のGCフレームのコドン割り当てとの対応は示唆的であるが、その対応はRNA–アミノ酸の親和性、コドン–アンチコドンの化学、そしてその後のコードの拡張や再割り当ても反映している。存在量は誰が初期に参入できたかを絞り込むが、それ自体で参入順序を固定するわけではない。
前生物的アミノ酸供給
対になった棒グラフは、ミラー型前生物合成によるグリシン、アラニン、アスパラギン酸、バリンの相対的収量と、マーチソン隕石抽出物中の相対的存在量を比較し、一方で挿入された系統樹は同じ分子を側鎖の化学性によって分類している。両方の証拠系列が同じ四つの小さく脂肪族または単純なアミノ酸を選び出しており、これによりそれらが基質制限された最初の翻訳装置にとって最も有力な候補となる。このパターンは初期の候補プールを制約するが、後のコドン割り当ての順序を固定するわけではない。