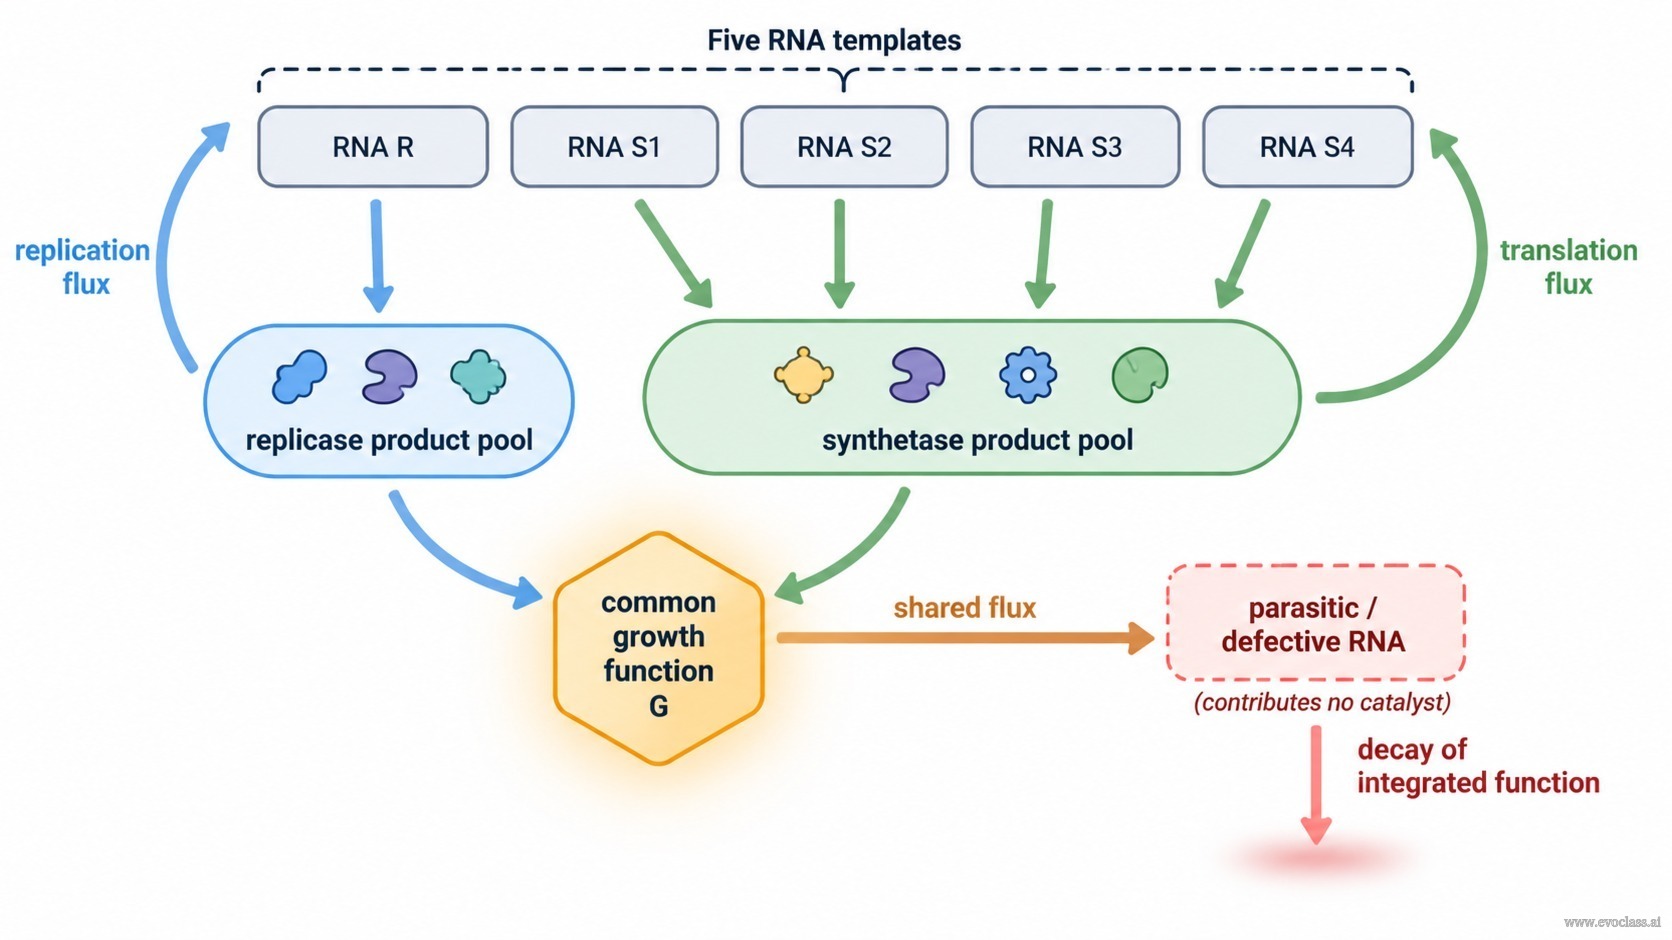
その 最小レプリカーゼ–シンセターゼ方式 は、具体的な分子提案として記述できる最小の翻訳共役ハイパーサイクルである:RNA鎖の集合で、一つの鋳型(R)がレプリカーゼをコードし、四つの鋳型(S1–S4)がシンセターゼをコードする。これは意図的に単一の自己複製RNAではない。代わりに、この方式はコンソーシアムである:同じRNA集団が複製のための鋳型と翻訳のためのメッセージの両方を供給する。
機能的連関:レプリカーゼ生成物は五つのRNA鎖すべてを複製し、シンセターゼ生成物はそれら同じ五つの鎖の翻訳を可能にする。同じ集団が鋳型でも触媒生成物でもあるため、複製と翻訳は別々のサブシステムではなく相互に結合している。この結合が最小ハイパーサイクルの構造的核心である。
共有成長の縮約:触媒が集合全体に作用するとき、個々の複製項と翻訳項は触媒をコードする鎖に私的なものではない。それらは共有プール項となる。数学的には、結合系はすべての鎖に対する単一の 共通成長関数 G に縮約される。各鎖の正味成長は集合的寄与と相対組成項の和として書けるが、触媒を生産することへの選択的報酬は希釈される。なぜならすべての構成員が同じ成長流束を利用するからである。
減衰機構:すべての構成員が同じ成長流束を利用するため、触媒生産を減らすか省略する変異体も共有の利益を受け取る。そのような変異体がより速く複製する場合—例えばそのRNAがより短いために—レプリカーゼやシンセターゼ活性に寄与することなく相対頻度を増やしうる。これは機能的な触媒を希釈し、寄生性または退化した鎖の蓄積を許す。したがって最小方式だけでは、堅牢なダーウィン的統合には不十分である。
安定性への含意:減衰を抑えるには、追加の組織化が必要である。区画化、空間構造、またはハイパーサイクル的閉包は、触媒・鋳型・生成物を共局在化させることで、鎖の生存を自身の触媒寄与に依存させうる。そのような組織化は化学量論的バランスを維持し、共通成長流束が非生産的な変異体に奪われるのを防ぐ。
分析的ニュアンス:原典の扱い(66~76ページ)では、共通成長の縮約は集団変数のアフィン変換を通じて示される。この変換は集合的成長モードを相対組成モードから分離する。共通成長モードは集合全体の拡大を表し、残りのモードは組成がどのように変化するか——寄生鎖や欠陥鎖の侵入を含む——を表す。この座標変換により、共通成長が各成分の触媒的寄与を選択的に報いることができない理由が明らかになる。
最小レプリカーゼ・シンセターゼ方式
5つのRNA鋳型——レプリカーゼをコードするRとシンテターゼをコードするS1~S4——がレプリカーゼとシンテターゼの産物プールに供給される。両プールは共通の成長関数Gに収束する。破線で示された寄生RNAは同じ流束を受け取るが触媒を寄与せず、統合された機能の減衰を引き起こす。