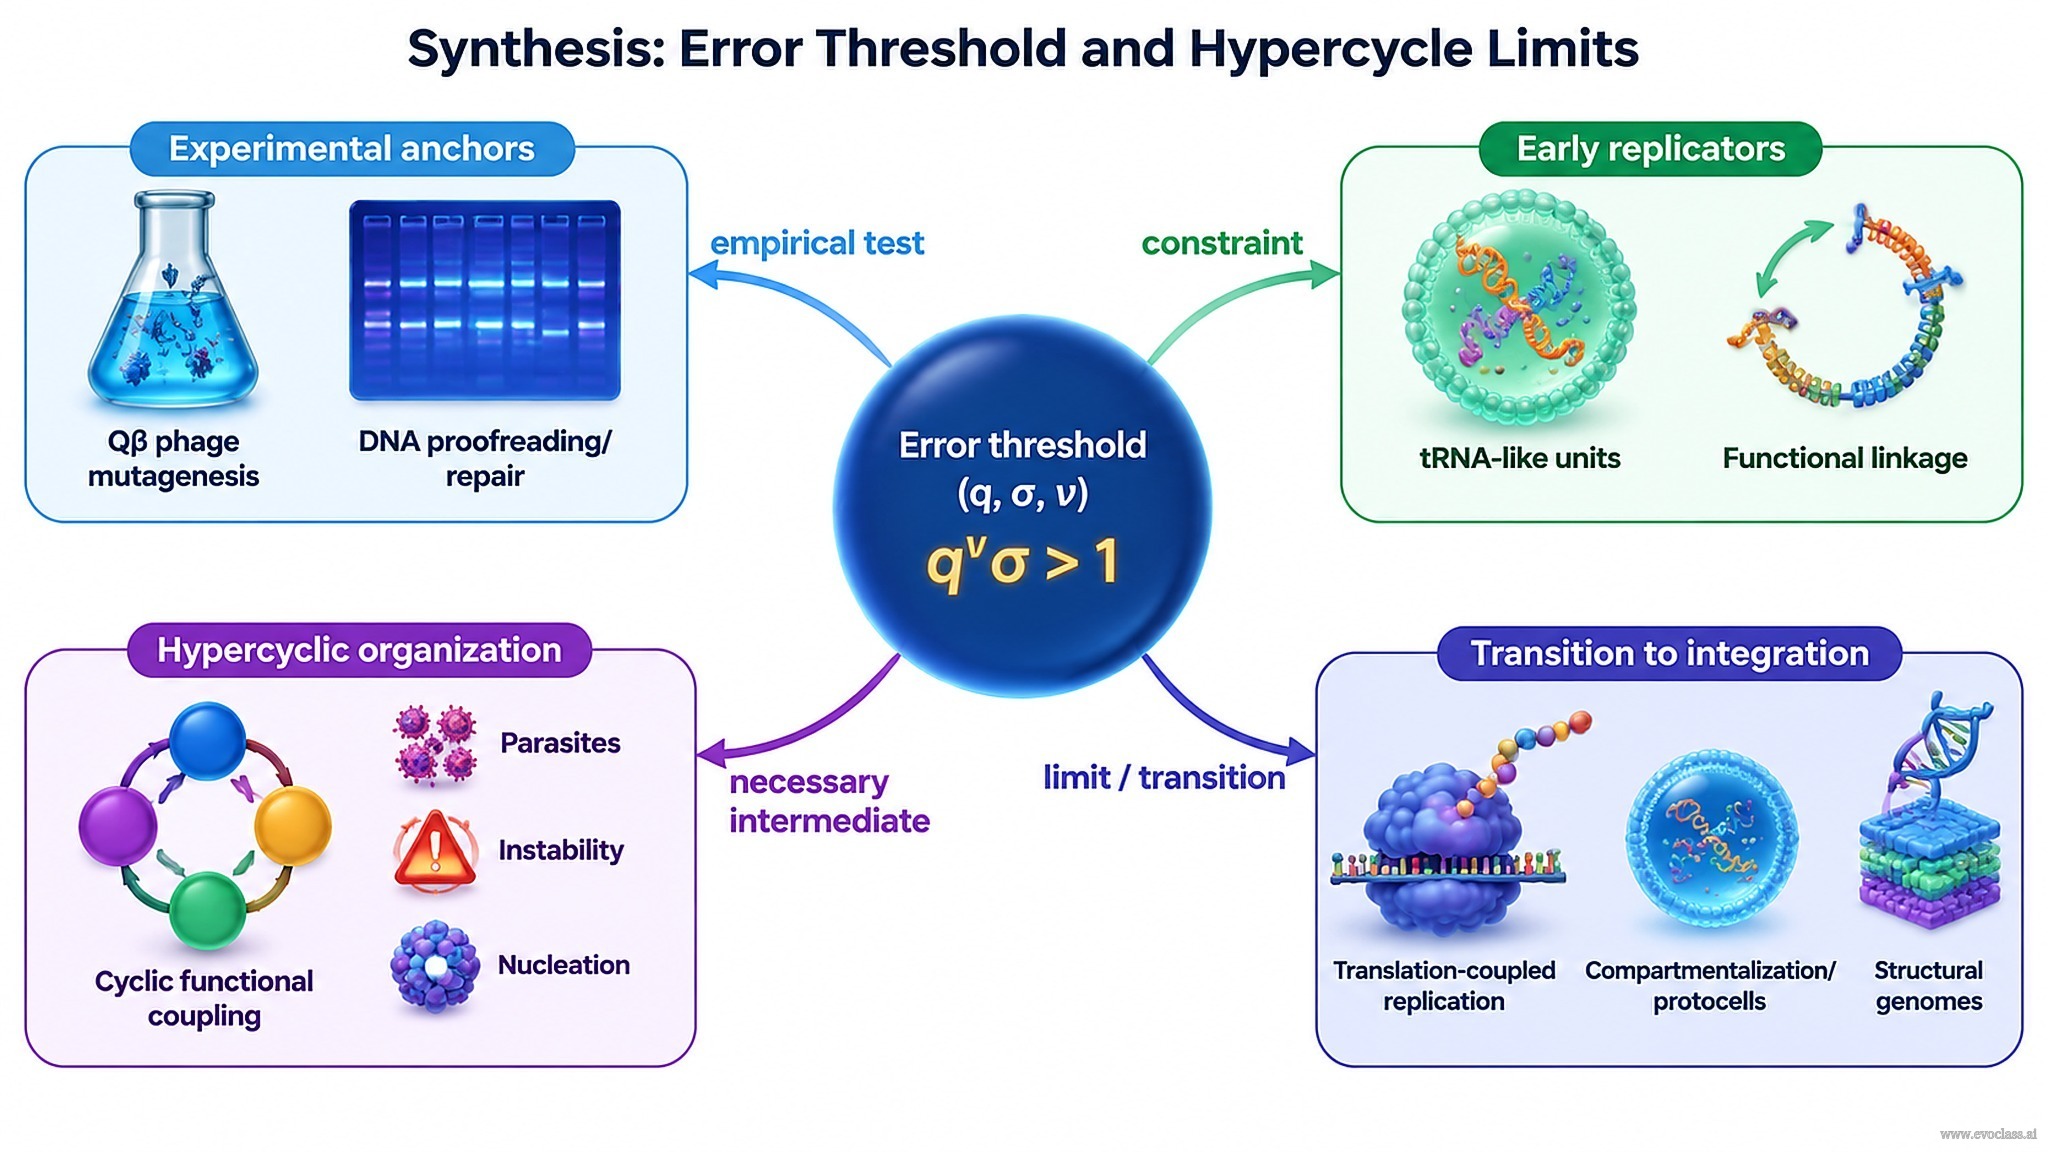
その エラー閾値 は、与えられた複製忠実度と選択的優位のもとで原始的な複製子が維持できる最大安定情報を定める。配列長νと選択的優越σに対して、安定な維持には次が必要である。
文進化ゲーム
文進化ゲームは、3つの変数を用いて同じ制約を形式化する: q̄m (複製精度)、 σm (選択的優位性)、および vm (配列長)。これらを合わせることで、意味のある配列が維持されるか失われるかを予測する。q̄mやσmを改善せずにvmを増やすと、系はエラー閾値を超えてしまうため、安定した情報は忠実度、選択、長さが同時に均衡している場合にのみ存続する。
実験的根拠:QβファージとDNA校正
Qβファージの変異誘発実験は実証的な根拠を与える:変異負荷が増すと変異体の分布が広がり、野生型の優位性が侵食され、エラー閾値への接近が示される。対照的に、DNAの校正と修復は実効変異率μを低下させ、境界を移動させて、より大きな安定ゲノムを可能にする。したがってRNA複製子はエラー閾値に近づく傾向があり、校正を行う生物はより多くの情報を維持できる。
初期の複製子と機能的結合
初期の複製単位はおそらく短く、tRNA様のままであった。その忠実度はコード能力と触媒能力の両方を制約したため、大きなゲノムを担うことはできなかった。共有結合による連結ではなく、機能的または触媒的な結合によって結ばれていた:各複製子が他者の複製や活性を支え、単一の統合された染色体ではなく協調的なネットワークを形成していた。
超循環的組織化:必要な中間段階
超循環的組織化は複製子を循環的に結合し、集合的選択、より多くの機能の統合、そして翻訳への道筋を可能にする。したがって低い忠実度の下では必要不可欠な中間段階である。しかし超循環には限界がある:寄生性または利己的な変異体による搾取に脆弱であり、空間的または区画的な構造に依存し、安定性と核形成の問題を抱え、振動的またはリミットサイクル的な動態を示すことがあり、すべての遺伝子を構造的に統合することはできない。
超循環を超えて:翻訳、区画化、構造的ゲノム
超循環を超えた改善には、翻訳共役複製、区画化またはプロトセル、そして統合されたゲノムへの構造的統合が含まれる。これらの変化は遺伝を統合された単位全体と一致させ、選択が緩く結合した複製子ではなく遺伝子の集合全体に作用することを可能にする。
エラー閾値の概念マップ
概念マップはエラー閾値条件を中心とする。そこから、Qβファージの変異誘発やDNA校正といった実験的根拠、機能的結合を伴う初期のtRNA様複製子、寄生体と不安定性の限界を伴う超循環的組織化、そして翻訳、区画化、構造的ゲノムへの移行へと分岐する。矢印のラベルは「実証的検証」「制約」「必要不可欠な中間段階」「限界/移行」を示す。