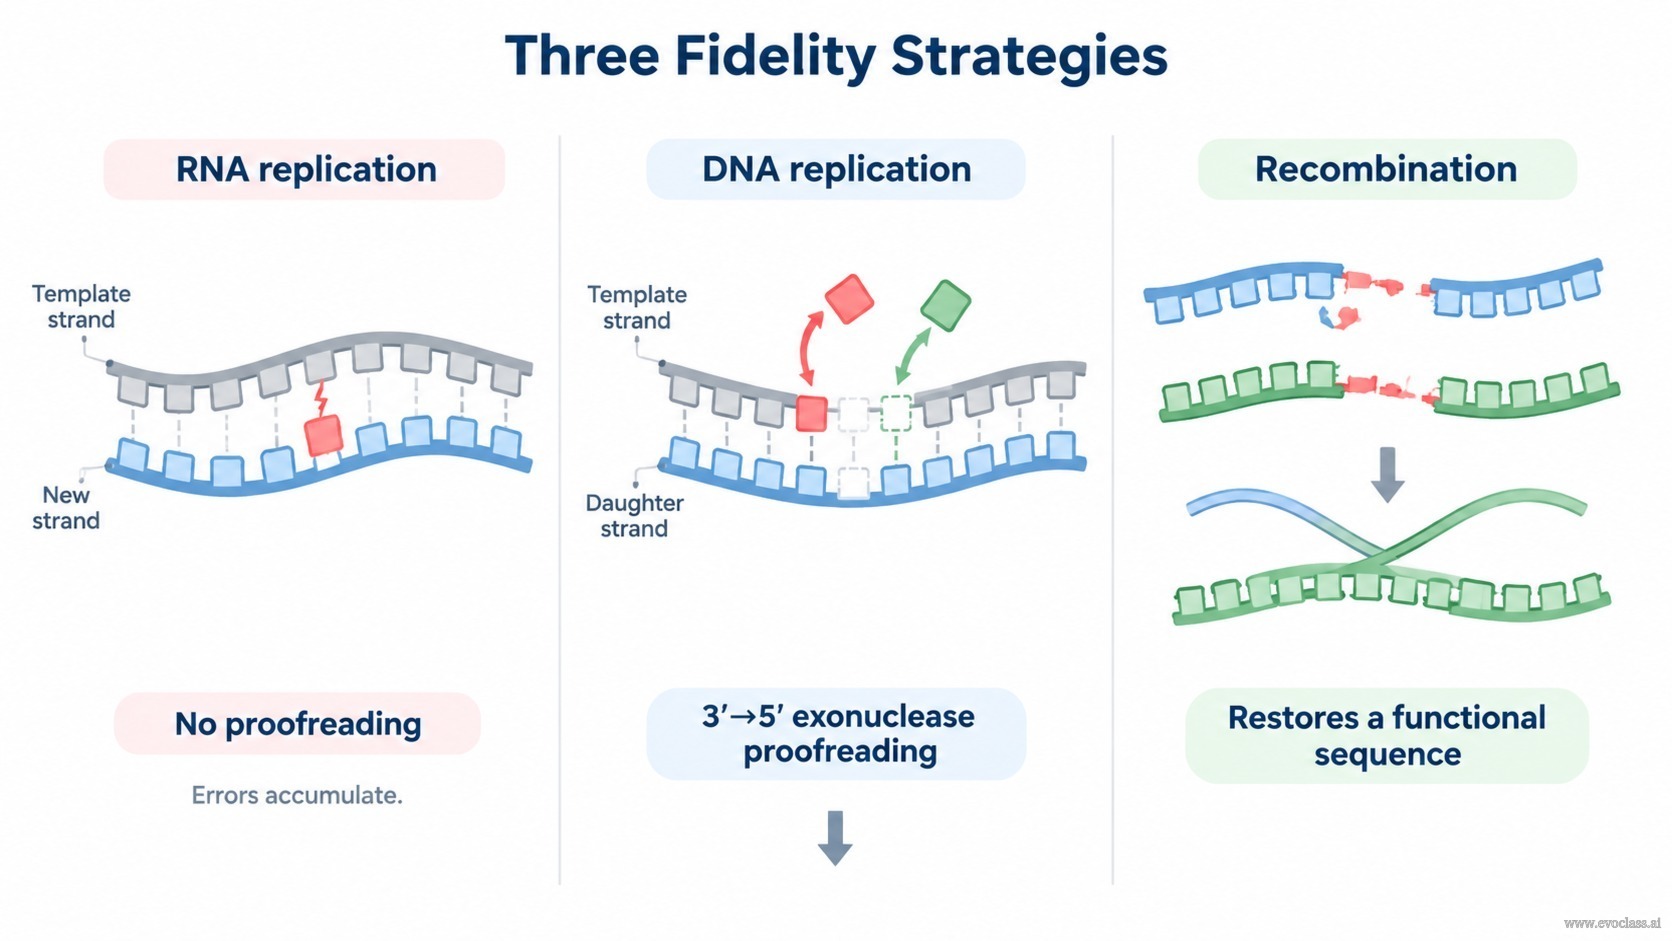
複製子がどれだけの情報を保持できるかを決めるのは、3つの異なる戦略である。RNA複製がもつ固有の忠実度、DNA複製が備えるエキソヌクレアーゼによる校正、そして単一の塩基対ではなく鋳型や集団のレベルで情報を編集する組換えである。これらが相まって実効的な突然変異率を決め、ひいては誤り閾値がどこに位置するか、そして準種(クエーシスピーシーズ)がどれほどの安定性を保てるかが定まる。
RNA複製:校正を伴わない高速なコピー
RNAレプリカーゼは一般に、3′→5′エキソヌクレアーゼドメインをもたずに伸長中の鎖を延長する。したがって誤って取り込まれたヌクレオチドは認識も除去もされず、複製は編集を伴わない単一の合成段階となって、誤りは娘鎖へと持ち越される。その結果、塩基あたりの誤り率は高くなり、複製した10⁴塩基あたりおよそ1つの誤りという水準になる。ゲノム長が増すにつれて誤りのない子孫の割合は減衰するため、長いゲノムは維持できず、RNAゲノムはコンパクトにとどまり誤り閾値の近くに位置することになる。Qβファージの変異誘発実験はこの領域をよく示している。すなわち、単一の鋭い野生型配列ではなく、マスター配列を中心に広く分布した変異体の雲として集団が現れるのである。
DNA複製:校正がゲノム長を獲得する
DNAポリメラーゼは通常、新たに付加された3′末端を検査する3′→5′エキソヌクレアーゼ活性を備えている。ミスマッチを検出すると、この酵素は進行方向を反転させ、伸長が再開する前に誤ったヌクレオチドを加水分解する。こうして誤りは取り除かれ、正しい塩基が取り込まれる。塩基対形成の選択性に加えて校正が働くことで、誤り率は2〜3桁低下する。誤り閾値の観点では、塩基あたりの正確度qが高いほど、選択が維持できる最大ゲノムは大きくなる。νmax ≈ ln σm ⁄ (1 − q) であるから、誤り率 (1 − q) が小さくなるほど制約が緩み、安定して遺伝されるより大きなゲノムが可能になる。校正を失ったDNAポリメラーゼのエキソヌクレアーゼ変異体は、まさに予測どおりの突然変異率の上昇と、実効的なゲノムサイズの縮小を示す。
組換え:鋳型レベルでの修復と再集合
組換えは、ポリメラーゼ活性部位における塩基対形成を改善するものではない。代わりに鋳型と集団に作用する。相同組換えは、異なる損傷を受けた2つの鋳型から完全な配列を再構築できる。鋳型スイッチングは、停止したコピーや誤りを抱えたコピーを救済できる。そして再集合は、有益な変異体を1つのバックグラウンドに組み合わせつつ、有害な変異体を排除することができる。その効果は共感染、利用可能な相同性、そして選択の強さに依存する。したがって準種の観点からは、組換えは塩基あたりの誤り率そのものではなく、実効的な変異体負荷と集団レベルの突然変異–選択バランスを変えるものといえる。
誤り閾値と準種への帰結
RNAの高い誤り率はνmaxを制約し、集団を誤り閾値の近くにとどめる。DNAの校正は誤り率を下げ、その制約を緩める。組換えは実効的な変異体負荷を減らしたり、適応度の高い配列を再生したりして、選択が作用する変異体の分布を変える。比較の原理はそこから直接導かれる。RNAの忠実度は急速な変異とコンパクトな情報を促し、DNAの校正はゲノムの拡大と安定した遺伝を促し、組換えは集団レベルの修復とモジュール的な革新を促す。これらは相互排他的なものではなく補完的な戦略であり、実際の複製子はこれらを程度の差こそあれ組み合わせている。
比較の原理。 RNAの忠実度:急速な変異、コンパクトなゲノム、高い誤り負荷。DNAの校正:桁違いに低い誤り率、νmaxの上昇、大きなゲノムの安定した遺伝。組換え:塩基対形成の正確さは変化しないが、集団レベルの修復、再集合、有害変異体の排除をもたらす。
3つの忠実度戦略
左:RNA複製はミスマッチした塩基を取り込み、校正機能をもたないためそれを娘鎖に残すので、塩基あたりの誤り率は高いままとなる。中央:DNAポリメラーゼの3′→5′エキソヌクレアーゼがミスマッチした3′ヌクレオチドを切除し、正しいものを取り込むことで、誤り率を桁違いに下げる。右:組換えは異なる損傷を受けた2つの鋳型をつなぎ合わせて機能的な配列を復元し、単一の塩基対ではなく集団レベルで情報を修復する。