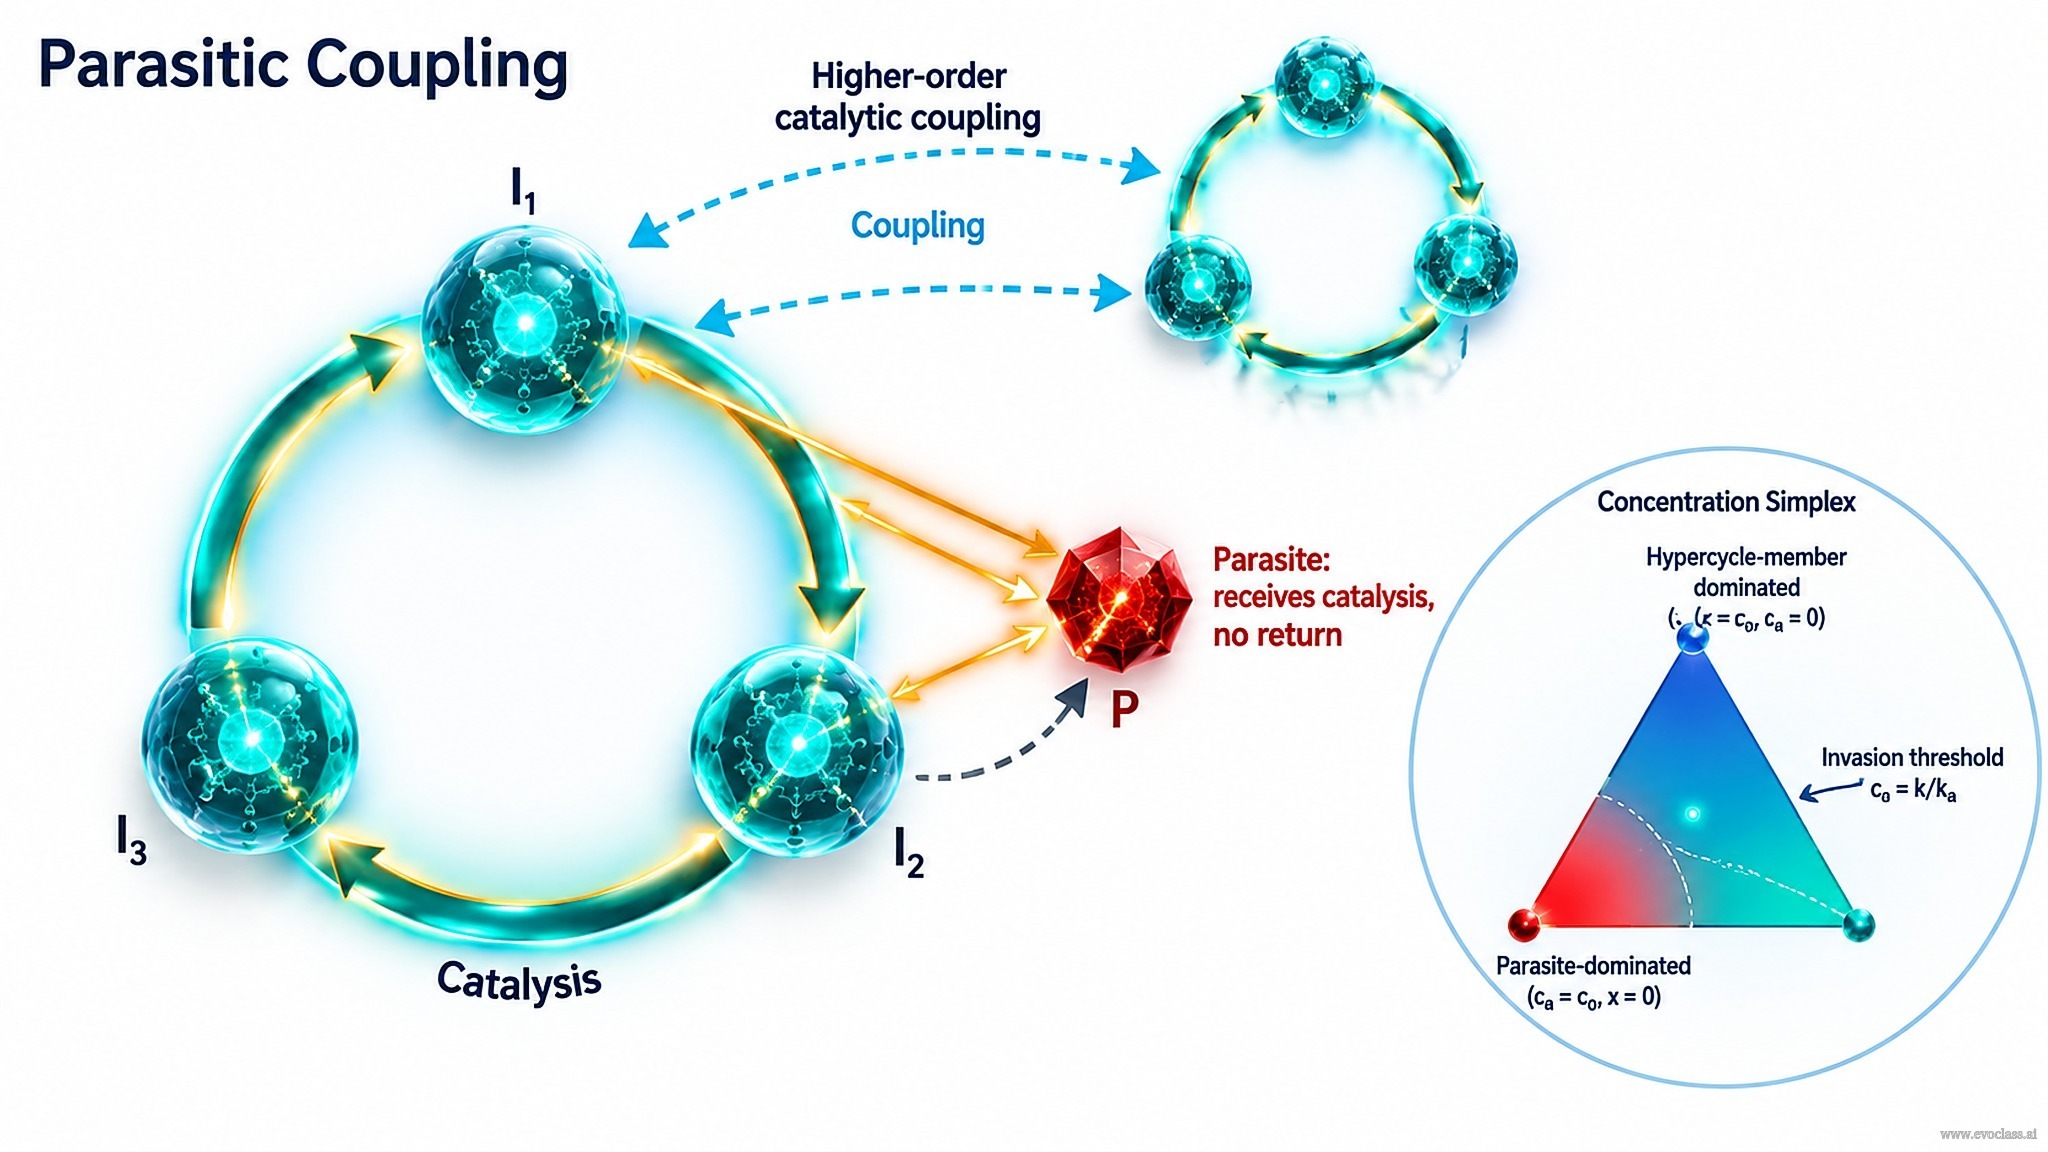
L'organizzazione iperciclica integra replicatori altrimenti in competizione tra loro attraverso una chiusura catalitica, ma rimane vulnerabile allo sfruttamento parassitario e ai limiti della soglia d'errore e dell'informazione. L'accoppiamento catalitico di ordine superiore — ipercicli che catalizzano altri ipercicli — estende questa organizzazione in modo gerarchico, ma crea anche nuovi problemi di integrazione e di parassitismo.
Accoppiamento parassitario
A parassita riceve supporto catalitico da uno o più membri dell'iperciclo senza contribuire al circuito catalitico dell'iperciclo. Sfrutta il ciclo senza restituire alcun aiuto catalitico. Per un parassita autoreplicante A che compete con un membro dell'iperciclo x a concentrazione totale costante
ċₐ = kₐ cₐ² − (cₐ/c0)(kₐ cₐ² + k cₐ x)
Il sistema ha due punti fissi agli angoli del simplesso delle concentrazioni S2: dominanza del parassita (cₐ = c0,
Il problema dell'integrazione
La legatura diretta in un'unica grande unità replicativa è proibitiva a causa della relazione di soglia per vₘₐₓ. Le unità integrate devono rimanere competitive rispetto ai propri mutanti per evolversi ulteriormente ed evitare di perdere la loro informazione specifica. La domanda di integrazione assegnata chiede: «Come si può immaginare un'integrazione di molecole competitive, diversa dalla legatura in un'unica grande unità replicativa, che è proibitiva a causa della relazione di soglia per vₘₐₓ? (Si noti che le unità da integrare devono rimanere competitive rispetto ai propri mutanti per evolversi ulteriormente e non perdere la loro informazione specifica.)»
I percorsi possibili includono:
- Accoppiamento funzionale: le molecole cooperano cataliticamente senza fusione covalente.
- Compartimentazione: i componenti restano insieme in un volume delimitato.
- L'organizzazione iperciclica: i concorrenti sono integrati attraverso un ciclo catalitico.
Qualsiasi percorso deve permettere alle unità integrate di rimanere competitive rispetto ai propri mutanti.
Perché l'organizzazione iperciclica di geni separati?
Un unico grande genoma accumula un'esplosione combinatoria di sequenze mutanti con l'aumentare della sua lunghezza. Per 100 siti ci sono 100 mutanti con un errore, 4 950 mutanti con due errori, 161 700 mutanti con tre errori, e così via. Oltre la soglia d'errore la replicazione senza errori diventa impossibile. L'organizzazione iperciclica distribuisce l'informazione e consente la selezione tra moduli mutanti, riducendo l'onere di mantenimento di un unico lungo genoma.
Limiti e miglioramenti
I limiti dell'organizzazione iperciclica includono la suscettibilità ai parassiti, i vincoli della soglia d'errore sul contenuto informativo totale e un coordinamento lento o inefficiente tra geni separati. Tra i miglioramenti o le transizioni proposte vi sono un'integrazione strutturale più stretta, la compartimentazione e l'evoluzione di un unico genoma che garantisca la co-segregazione dei geni cooperanti.
Accoppiamento catalitico di ordine superiore
L'accoppiamento catalitico di ordine superiore si verifica quando gli ipercicli catalizzano altri ipercicli. Questo estende l'integrazione oltre un singolo ciclo, ma introduce nuove sfide di parassitismo, coordinamento e stabilità. Negli ipercicli accoppiati alla traduzione, l'accoppiamento della replicazione alla sintesi di polipeptidi aggiunge la formazione di complessi e le costanti di associazione; i limiti di bassa e alta concentrazione e la cinetica saturante modificano gli stessi vincoli di integrazione e di parassitismo.
Accoppiamento parassitario
Un anello iperciclico sostiene un nodo parassitario che non restituisce alcun aiuto catalitico, mentre le frecce tratteggiate mostrano un iperciclo che catalizza un secondo iperciclo. Il simplesso delle concentrazioni in riquadro indica i punti fissi agli angoli dominati dal parassita e dal membro dell'iperciclo e la soglia d'invasione c