8
Limiti dell'organizzazione iperciclica e dinamica dei parassiti
HYC-1979 Lesson 3: Error Threshold and Early Replicative Units
00:00

L'organizzazione iperciclica può integrare diverse unità catalitiche in un'unica rete autoriproducente, ma tale integrazione è limitata. In condizioni di dinamica di azione di massa a organizzazione costante, un iperciclo affronta simultaneamente due pressioni distinte: parassiti autoriproduttivi che raccolgono la catalisi senza restituirla, e il carico mutazionale combinatorio che cresce rapidamente con l'allungamento del genoma. Insieme, questi fattori definiscono un limite centrale dell'organizzazione iperciclica.

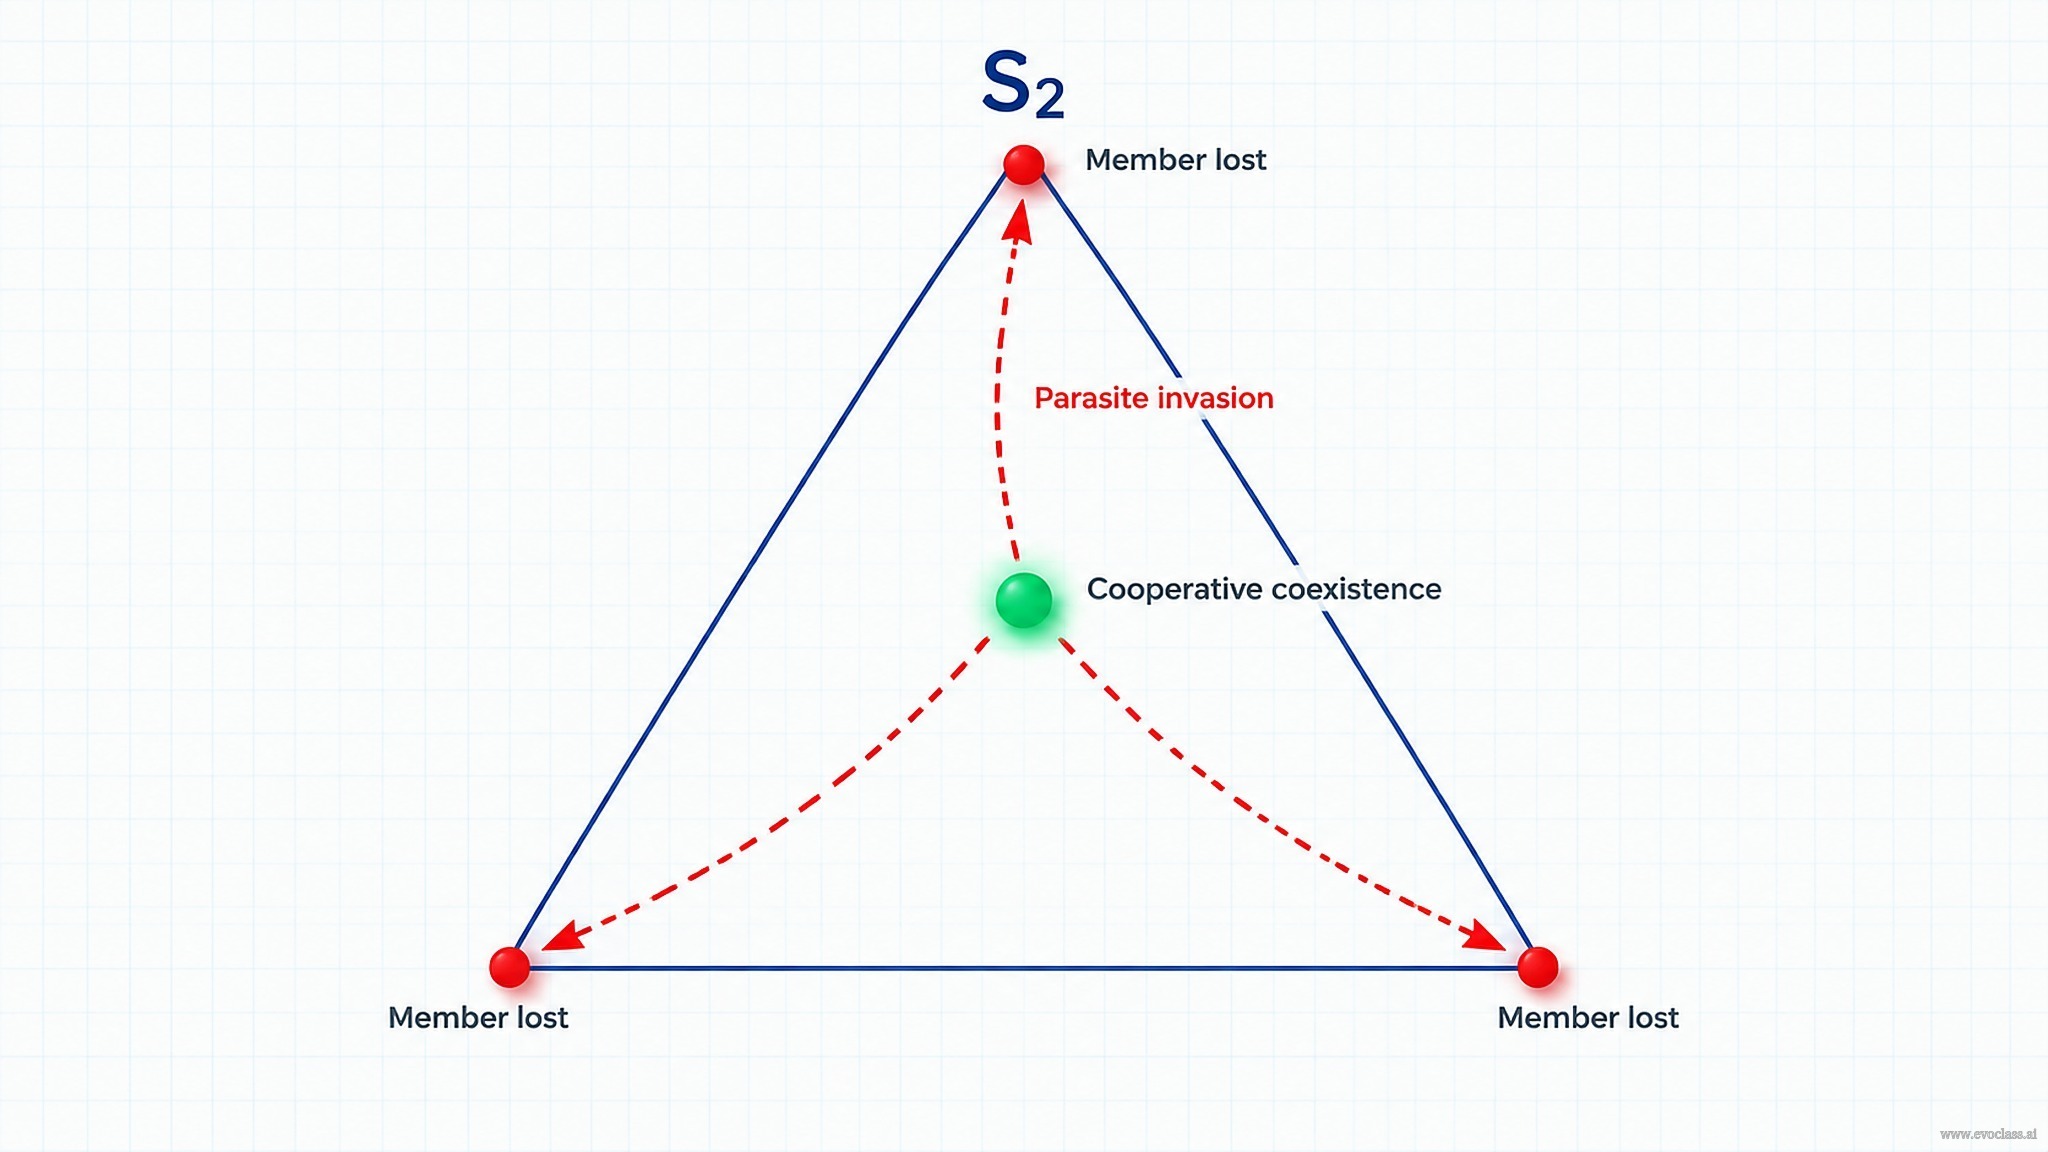
Simplesso di concentrazione S2: coesistenza interna vs. collasso verso il vertice L'invasione del parassita spinge lo stato cooperativo interno verso il bordo punto fisso al vertice vertice dominato dal parassita vertice del membro del ciclo interno: stato cooperativo Legenda Interno: tutti i membri coesistono Vertice: un membro viene perso Deriva verso l'esterno indotta dal parassita Soglia di invasione ẋ > 0 per c0 < k / kA parassita contenuto ẋ < 0 per c0 > k / kA membro perso — il parassita invade

Parassiti sul simplesso di concentrazione

Si consideri un sistema a due componenti in cui un parassita e un membro dell'iperciclo x condividono una concentrazione totale . Il parassita si riproduce autocataliticamente (costante di velocità ) ed è sostenuto dalla catalisi fornita dal ciclo, mentre il membro x viene riprodotto attraverso l'accoppiamento . La dinamica a organizzazione costante (T.13.8) è:

Il segno di ẋ separa due regimi alla soglia : per il membro cresce e il parassita è contenuto; per il membro decade e il parassita invade. Questa è l'affermazione quantitativa del motivo per cui un parassita autoriproduttivo può destabilizzare un iperciclo.

Stati al vertice e stati interni

Un iperciclo ammette punti fissi sui vertici del simplesso di concentrazione, ciascuno corrispondente alla perdita di una componente, e uno stato interno che rappresenta la coesistenza cooperativa di tutti i membri. L'interno è produttivo ma fragile: è la regione dalla quale l'invasione del parassita può spingere la traiettoria verso il bordo, dove un membro viene perso definitivamente.

La crescita del genoma è combinatoriamente costosa

Allungare il genoma aumenta rapidamente il carico mutazionale. Per una sequenza di lunghezza 100 vi sono = (100 su k) mutanti con k errori: 100 mutanti con un errore, 4.950 mutanti con due errori, 161.700 mutanti con tre errori, e così via. Quando sono presenti n di tali mutanti con n ≪ , il numero delle loro combinazioni cresce come ( su n) ≈ ⁿ / n!. Questo è il motivo per cui un singolo genoma in continua crescita è svantaggiato rispetto all'organizzazione iperciclica di singoli geni mutanti: la cooperazione distribuisce la funzione catalitica in modo che nessuna singola sequenza lunga debba assorbire l'intero carico mutazionale.

Perché la struttura è importante
Questi limiti derivano dal presupposto di una selezione ben mescolata a organizzazione costante. Senza un'ulteriore struttura spaziale o compartimentale, gli ipercicli più grandi affrontano pressioni parassitarie e mutazionali in costante aumento, e lo stato cooperativo interno non può essere mantenuto indefinitamente.