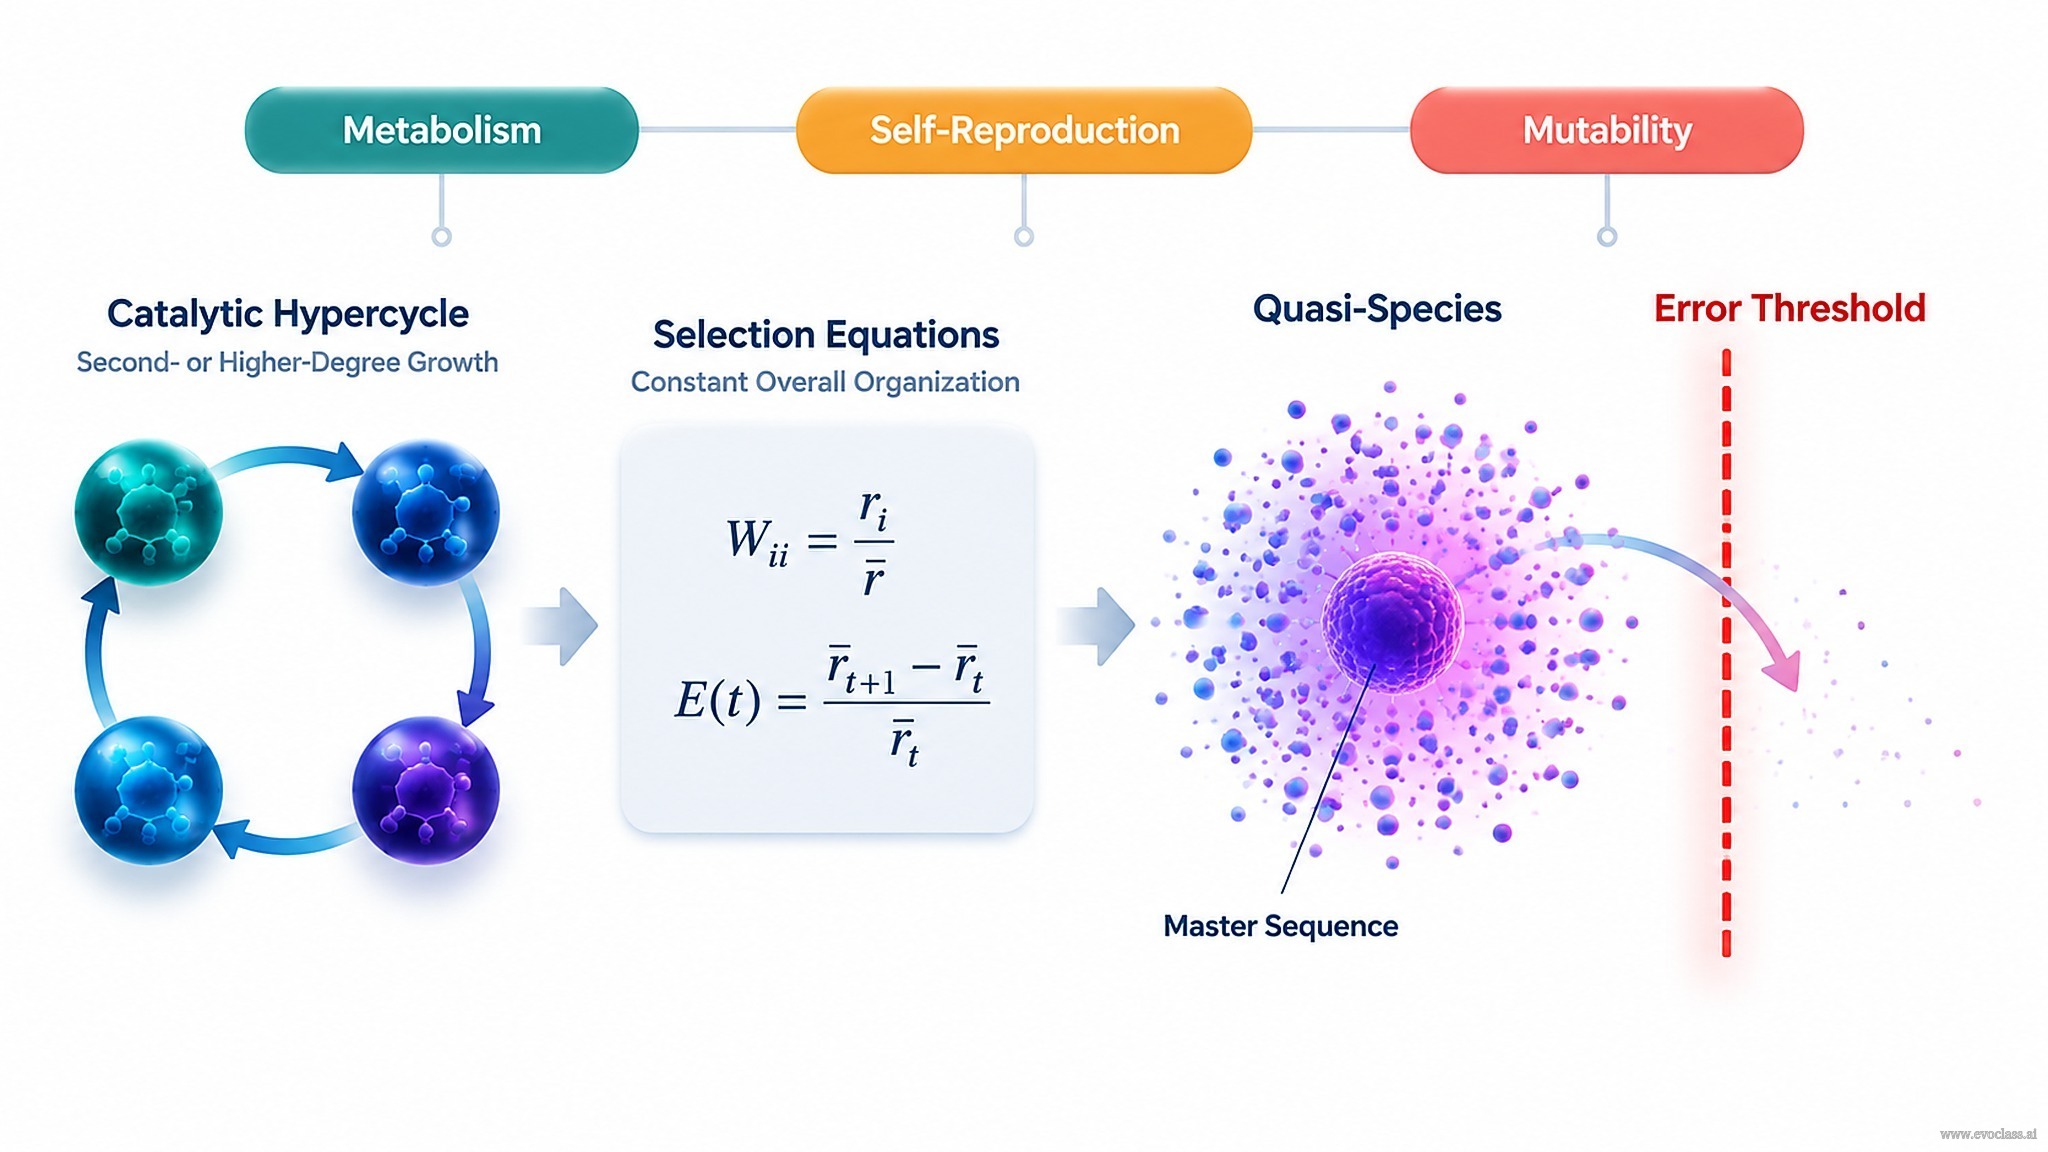
Pelajaran ini dibuka dengan pertanyaan yang menjadi inti teori asal-usul kehidupan: bagaimana sekumpulan molekul yang mereplikasi diri dapat menghasilkan seleksi molekuler tanpa mesin seluler yang sudah ada sebelumnya? Jawaban yang dikembangkan di sini adalah siklus hiper katalitik: keterkaitan siklik unit-unit yang mereplikasi diri di mana replikasi setiap unit didukung secara katalitik oleh anggota lain dalam siklus tersebut. Hasilnya adalah pengorganisasian diri secara kolektif, bukan sekumpulan replikator yang independen.
Tiga organisasi pertumbuhan
- Pertumbuhan katalitik biasa: katalis eksternal mendorong replikasi suatu templat, tetapi katalis itu sendiri tidak dihasilkan oleh siklus yang sama. Hukum pertumbuhannya tidak bersifat memperkuat diri sendiri.
- Pertumbuhan autokatalitik: suatu molekul mengkatalisis replikasinya sendiri atau replikasi sejenisnya. Laju pertumbuhannya mengandung suku yang sebanding dengan pangkat pertama konsentrasi replikator—penguatan diri derajat pertama.
- Pertumbuhan siklus hiper: replikasi diatur sebagai siklus tertutup A → B → C → ... → A. Karena setiap anggota dihasilkan melalui katalisis oleh anggota lain, pertumbuhan keseluruhannya bergantung pada hasil kali setidaknya dua konsentrasi. Inilah sebabnya siklus hiper katalitik merupakan sistem derajat kedua atau lebih tinggi.
Perbedaan ini penting karena hanya organisasi siklus hiper yang menghubungkan replikasi diri dengan dinamika nonlinier kolektif yang dapat mendukung seleksi pada tingkat molekuler.
Prasyarat Darwinian
Agar seleksi molekuler dapat terjadi, tiga kondisi harus dipenuhi:
- Metabolisme: sumber energi bebas dan material untuk mempertahankan keadaan terorganisir yang jauh dari keseimbangan.
- Reproduksi diri: kemampuan unit-unit untuk memperbanyak diri, sehingga varian yang menguntungkan dapat bertambah jumlahnya.
- Kemampuan bermutasi: variasi yang dapat diwariskan, tanpanya tidak ada substrat untuk seleksi.
Ketiga prasyarat ini adalah kondisi batas: prasyarat-prasyarat ini tidak dengan sendirinya menentukan dinamika kuantitatif, tetapi mendefinisikan domain di mana deskripsi Darwinian menjadi bermakna.
Persamaan seleksi pada organisasi keseluruhan yang konstan
Ketika konsentrasi total replikator dijaga konstan, frekuensi
Di sini Wii adalah nilai selektif dari replikator tipe i, yang mencakup laju replikasi dan degradasinya. E(t) adalah rata-rata produktivitas berlebih, yaitu rata-rata nilai selektif yang dibobot populasi. Suatu tipe meningkat frekuensinya ketika W_ii-nya melebihi E(t) dan menurun ketika berada di bawah E(t). Kondisi organisasi konstan menjadikan seleksi sebagai perbandingan relatif, bukan perlombaan pertumbuhan absolut.
Keseimbangan mutasi-seleksi dan kuasi-spesies
Replikasi nyata rentan terhadap kesalahan. Keseimbangan mutasi-seleksi tidak menghasilkan satu sekuens tipe liar yang dominan; sebaliknya, ia menghasilkan kuasi-spesies, yaitu distribusi terorganisir sekuens mutan yang berpusat pada sekuens induk. Karena itu, tipe liar adalah anggota yang paling mungkin dari awan sekuens terkait, bukan target seleksi yang unik. Distribusi ini stabil ketika keunggulan selektif sekuens induk mengimbangi aliran mutasi yang menjauhinya.
Ambang kesalahan
Kuasi-spesies hanya dapat bertahan jika laju mutasi per replikasi cukup rendah. Di luar ambang kesalahan, sekuens induk tidak dapat mentransmisikan informasinya secara andal, awan mutan terdelokalisasi, dan distribusi terorganisir runtuh menjadi keadaan yang teracak secara mutasional. Hal ini membatasi seberapa banyak informasi yang dapat dipertahankan secara reprodusibel oleh siklus hiper atau kuasi-spesies. Peta jalan pembuka—siklus katalitik → persamaan seleksi → kuasi-spesies → ambang kesalahan—dengan demikian menghubungkan pengorganisasian diri molekuler dengan plafon informasi fundamental evolusi Darwinian pada tingkat molekuler.
Peta jalan siklus hiper katalitik
Siklus hiper katalitik yang tertutup mengarah ke persamaan seleksi dengan nilai selektif Wᵢᵢ dan rata-rata produktivitas berlebih E(t), lalu menuju awan kuasi-spesies dan penghalang ambang kesalahan. Tiga prasyarat Darwinian—metabolisme, reproduksi diri, dan kemampuan bermutasi—membingkai transisi dari pengorganisasian diri molekuler menuju seleksi molekuler.