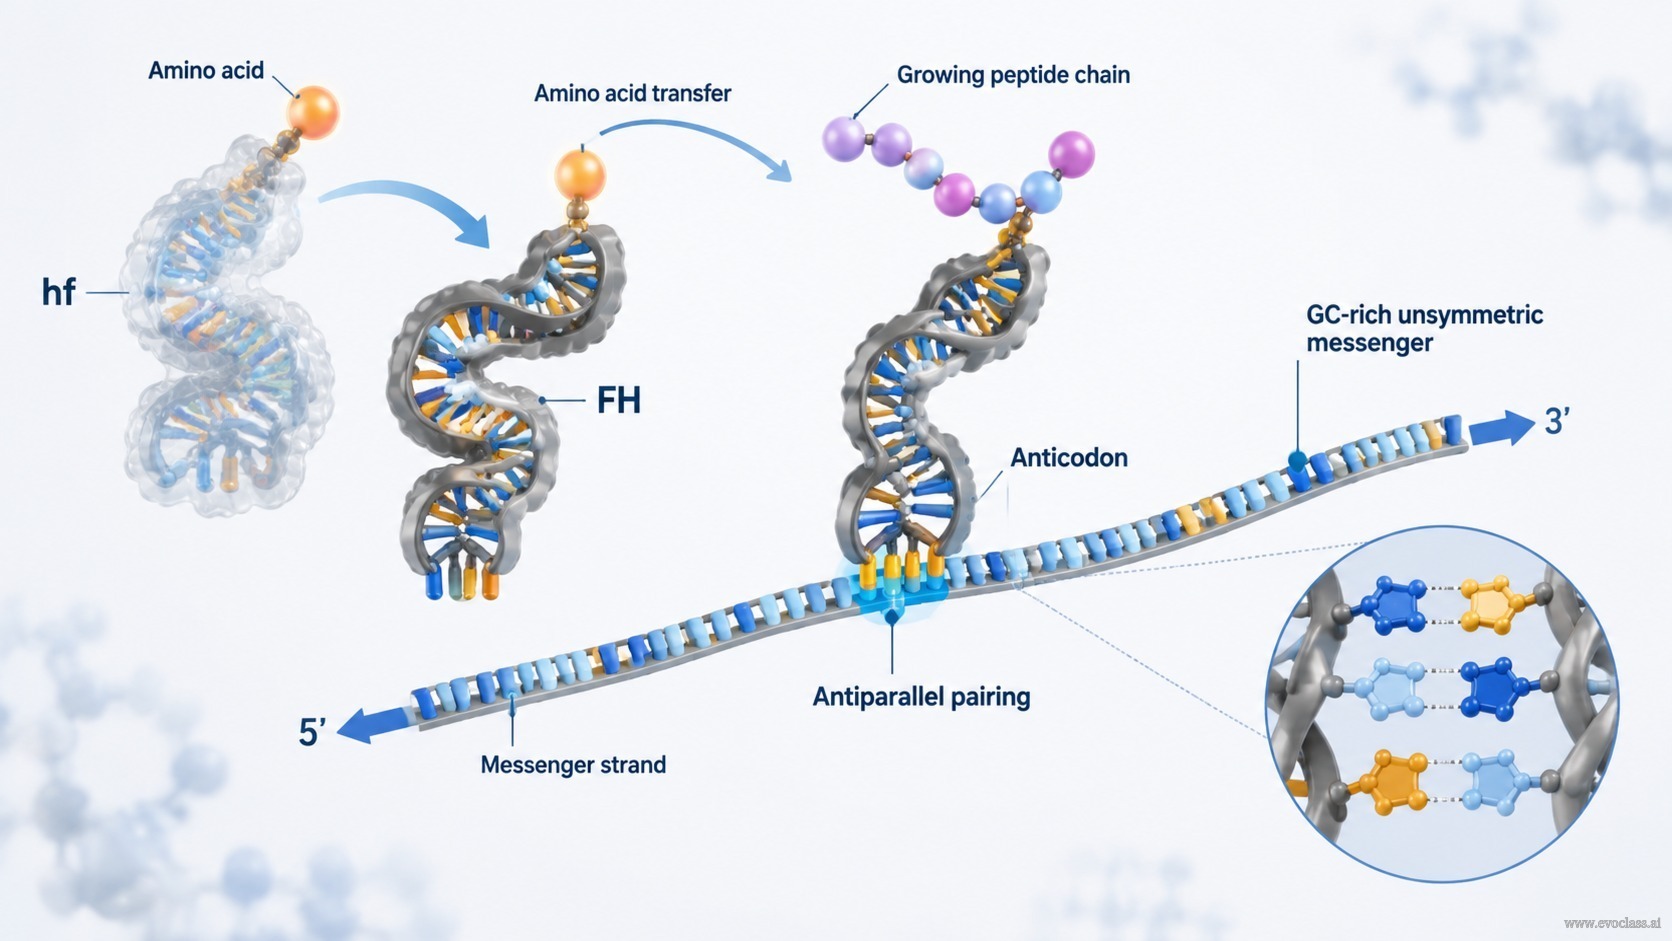
La traduction aux origines de la vie n'a pas nécessairement commencé avec un ribosome entièrement formé. Le modèle propose que de simples adaptateurs de type ARNt puissent lire un messager par appariement complémentaire et antiparallèle, à condition qu'un support catalytique pour la formation de la liaison peptidique soit disponible. La configuration de l'adaptateur dépend de son chargement : il adopte la configuration hf lorsqu'il porte un acide aminé, et la configuration FH lorsqu'il porte une chaîne peptidique. Le transfert de l'acide aminé vers la chaîne peptidique en croissance fait basculer l'adaptateur de hf à FH (cf. fig. 49).
Comme l'alignement adaptateur-messager est antiparallèle, un message peut être lu sans appareil de traduction sophistiqué. Le choix de motifs de départ riches en GC est dicté par quatre arguments : la stabilité de l'interaction adaptateur-messager et la fidélité de la réplication, qui favorisent toutes deux les combinaisons GC au départ, ainsi que la lecture sans virgule en traduction, qui exige un motif GC asymétrique. Ainsi, les motifs de messager sans virgule découlent d'un arrangement GC asymétrique qui permet la lecture sans séparateurs ni machinerie traductionnelle complexe.
Points mécanistiques clés
- Support catalytique reste nécessaire aux fonctions de traduction, mais la traduction primitive pourrait utiliser de simples adaptateurs plutôt qu'un ribosome complet.
- Conformation dépendante du chargement: la configuration de l'ARNt dépend du fait qu'il porte un acide aminé ou une chaîne peptidique. Le transfert fait basculer hf à FH.
- Appariement antiparallèle: l'alignement complémentaire adaptateur-messager est antiparallèle, ce qui permet la lecture sans appareil sophistiqué.
- Motifs riches en GC et asymétriques: la stabilité et la fidélité de réplication favorisent les GC ; la lecture sans virgule exige un GC asymétrique pour éviter l'ambiguïté des cadres chevauchants.
Lecture adaptateur-messager
Ce schéma montre des adaptateurs de type ARNt dans les configurations hf et FH, l'appariement complémentaire antiparallèle à un messager asymétrique riche en GC, et le transfert d'acide aminé qui fait basculer hf à FH, permettant une lecture sans virgule sans ribosome sophistiqué.