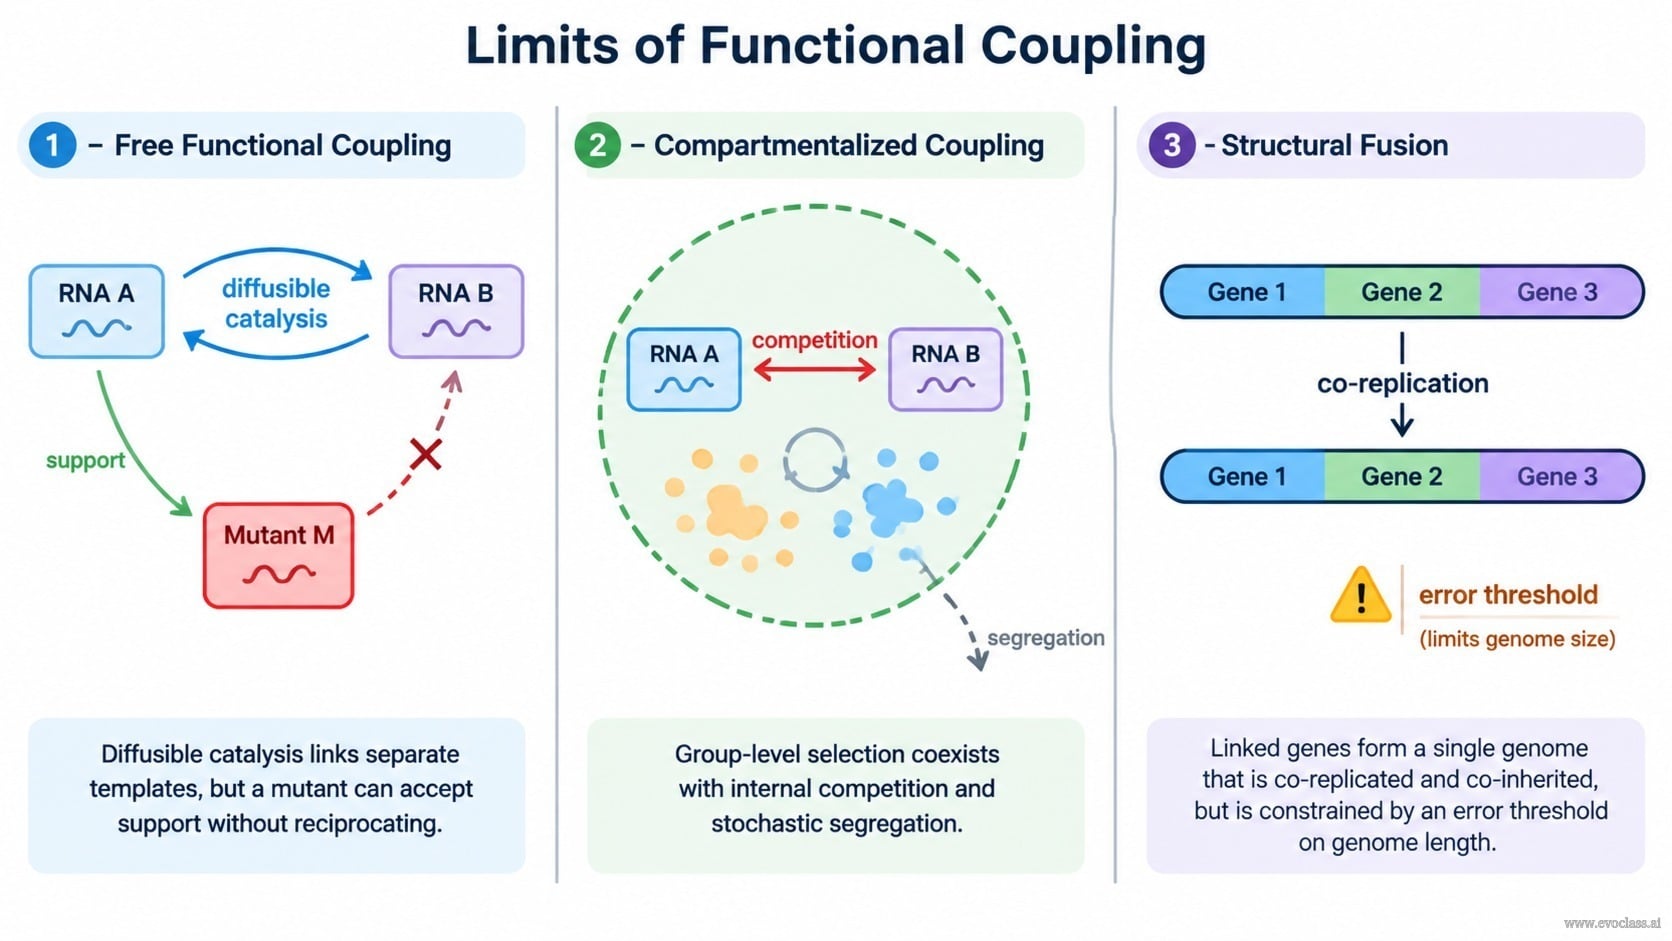
L'hypercycle primitif tire son avantage du couplage fonctionnel: chaque réplicateur catalyse la réplication d'un partenaire, et le partenaire lui rend la pareille, de sorte que les membres se soutiennent mutuellement sans être physiquement reliés. La traduction elle-même est difficile à imaginer débutant autrement — un ensemble de molécules coopérant par le biais de produits diffusibles plutôt que par un génome partagé.
Coopération n'est pas intégration
Un système messager stable exigerait que les partenaires coopérants soient hérités ensemble en tant qu'unité. Le couplage fonctionnel ne le permet pas. Les molécules couplées restent des matrices indépendantes, chacune soumise à sa propre réplication, mutation, diffusion et dilution, de sorte que les bénéfices de la coopération ne sont pas transmis de manière fiable. Quatre limites en découlent directement.
- Unités compétitives séparées. Chaque membre possède son propre taux de réplication et son propre taux de mutation. Une variante qui se copie plus vite, ou qui mute vers une forme plus économe, se propage selon ses propres mérites, indépendamment du groupe auquel elle appartient.
- Diffusion et dilution. Les produits catalytiques doivent diffuser pour atteindre leurs partenaires ; cette même diffusion, ainsi que le renouvellement du milieu environnant, retirent également des membres de l'ensemble. L'association est statistique, jamais garantie.
- Biens communs exploitables. La catalyse est un bénéfice partagé. Un mutant qui accepte le soutien sans le rendre obtient l'avantage du groupe sans en payer le coût, et peut envahir le système couplé.
- Absence de co-héritage. La réplication d'une matrice ne dit rien de la réplication de ses partenaires. Les partenaires peuvent être perdus de manière stochastique, de sorte que la fonction conjointe n'est pas héritable en tant qu'ensemble.
Deux voies vers la stabilité
La compartimentation. Enfermer l'ensemble couplé dans une vésicule ou une protocellule maintient les molécules associées dans l'espace. Comme le contenu se déplace ensemble, la sélection peut agir sur le groupe en tant que bloc plutôt que sur des molécules isolées, et la concentration locale des produits catalytiques augmente. La compartimentation est un véritable progrès, mais ce n'est pas un remède : la compétition interne pour les ressources partagées et la ségrégation stochastique des matrices se produisent toujours à l'intérieur du compartiment.
L'intégration structurelle. Fusionner les gènes en un seul polynucléotide ou chromosome lie physiquement leur réplication et leur héritage. La réplication copie désormais l'ensemble d'un coup, le génome devient l'unité de sélection, et les problèmes de diffusion et de triche sont largement éliminés, car les partenaires ne peuvent plus être hérités séparément.
Le compromis et l'étape non résolue
L'intégration structurelle n'est pas gratuite. Combiner de nombreux gènes en une seule molécule agrandit le génome, et un génome plus long accumule plus facilement les erreurs de réplication, ce qui le confronte à la limite du seuil d'erreur sur la quantité d'information stable qu'il peut porter. La compartimentation et l'intégration résolvent donc les problèmes de triche et de ségrégation tout en introduisant leurs propres contraintes.
Cela laisse l'étape centrale non résolue : le couplage fonctionnel est une condition plausible pour le démarrage de la traduction, mais il a finalement été remplacé par une intégration structurelle complète, puisque même les génomes cellulaires les plus primitifs connus sont des unités structurelles. Expliquer précisément comment la transition du couplage à l'intégration a été réalisée — et quelles organisations intermédiaires l'ont rendue possible — reste un problème ouvert.
Les limites du couplage fonctionnel
Trois régimes de coopération moléculaire comparés côte à côte : le couplage fonctionnel libre, où la catalyse diffusible relie des matrices séparées mais où un mutant peut accepter le soutien sans le rendre ; le couplage compartimenté à l'intérieur d'une vésicule, où la sélection au niveau du groupe coexiste avec la compétition interne et la ségrégation stochastique ; et la fusion structurelle complète, où les gènes liés forment un seul génome qui est co-répliqué et co-hérité, mais contraint par un seuil d'erreur sur la longueur du génome.