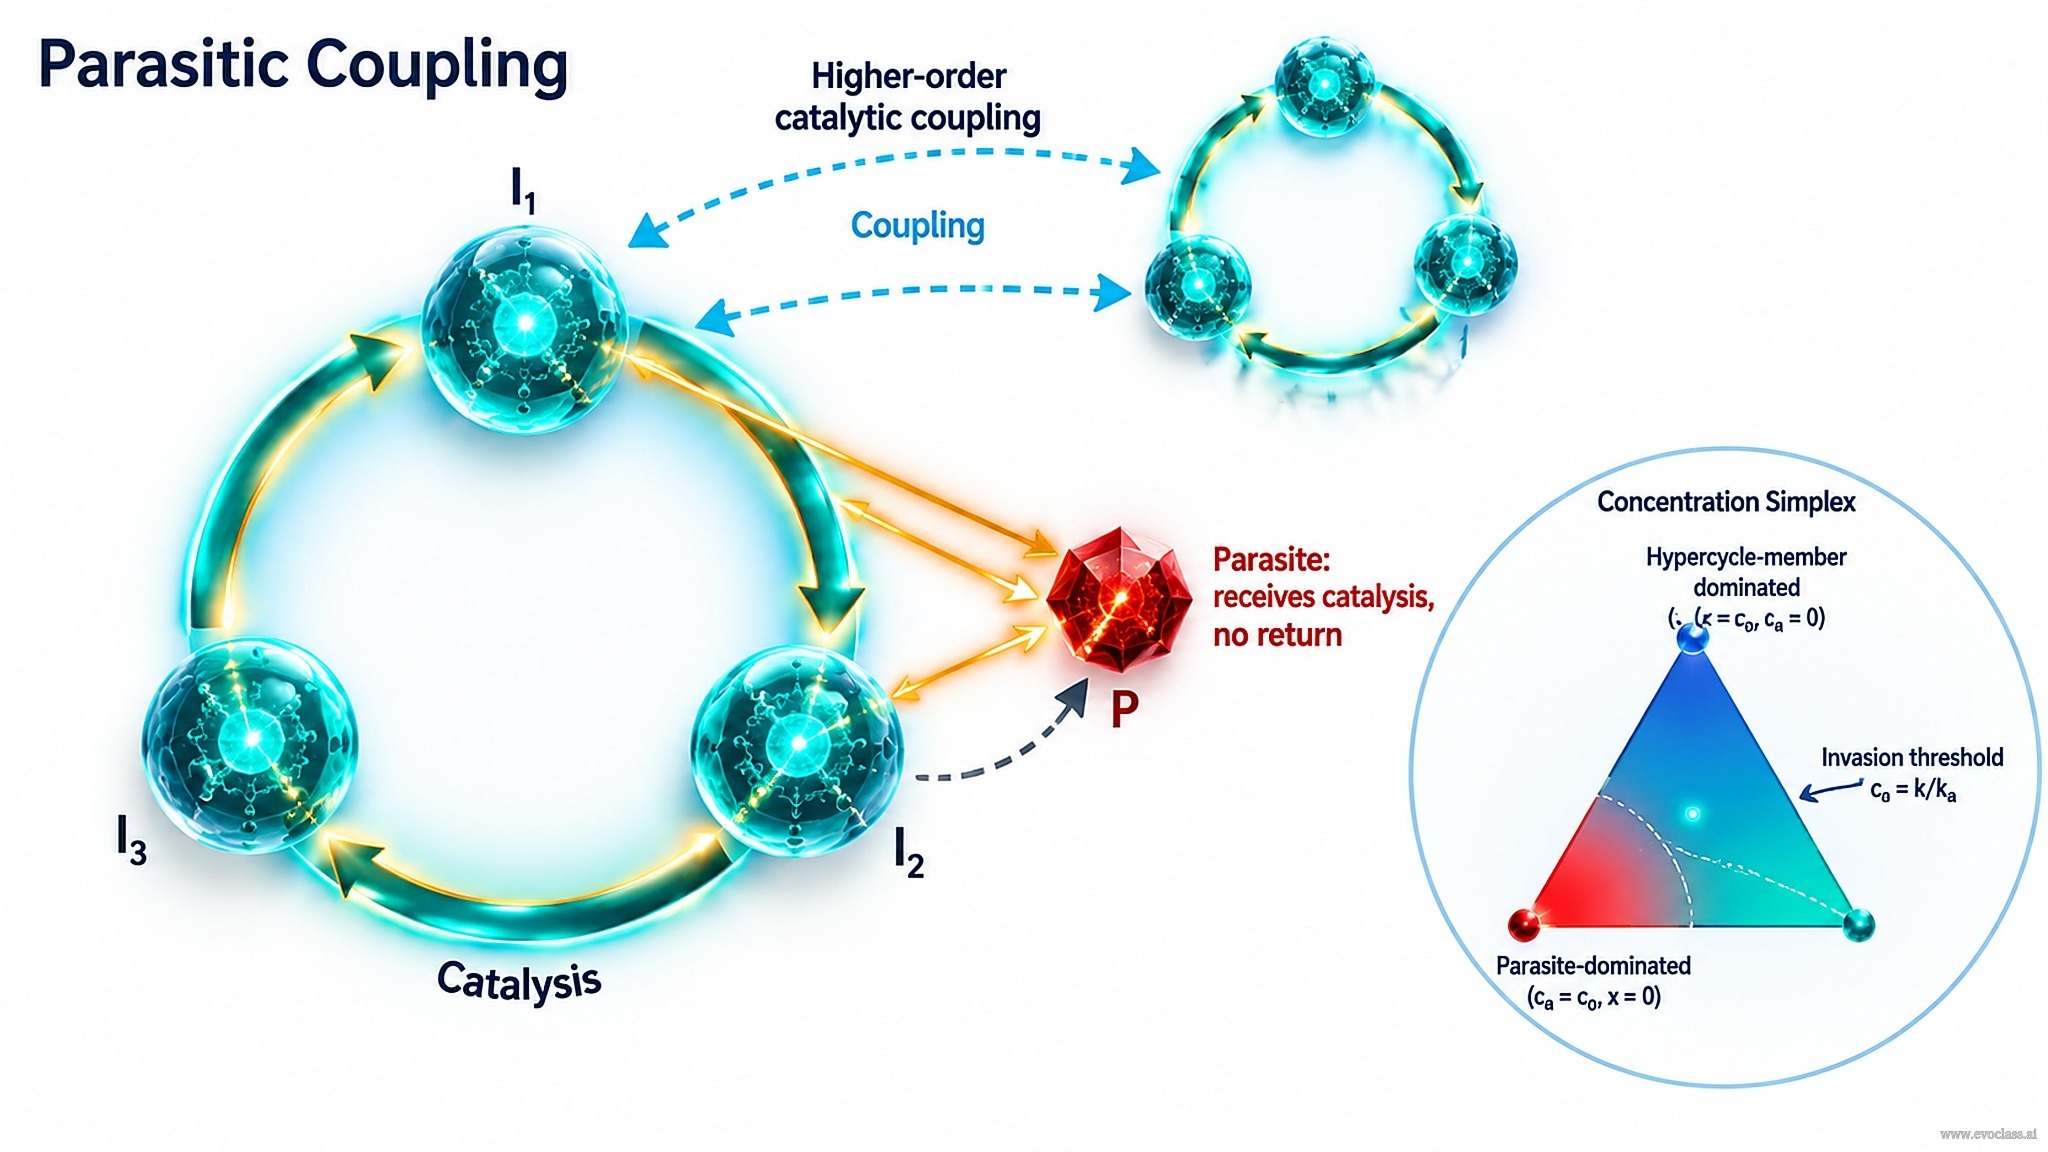
L'organisation hypercyclique intègre des réplicateurs autrement concurrents par le biais d'une fermeture catalytique, mais elle reste vulnérable à l'exploitation parasitaire ainsi qu'aux limites du seuil d'erreur et de l'information. Le couplage catalytique d'ordre supérieur — des hypercycles catalysant d'autres hypercycles — étend cette organisation de manière hiérarchique, mais engendre aussi de nouveaux problèmes d'intégration et de parasitisme.
Couplage parasitaire
A parasite reçoit un soutien catalytique d'un ou plusieurs membres de l'hypercycle sans contribuer à la boucle catalytique de l'hypercycle. Il exploite le cycle sans rendre d'aide catalytique. Pour un parasite auto-reproducteur A en compétition avec un membre d'hypercycle x à concentration totale constante
ċₐ = kₐ cₐ² − (cₐ/c0)(kₐ cₐ² + k cₐ x)
Le système possède deux points fixes aux sommets du simplexe de concentration S2: dominance du parasite (cₐ = c0,
Problème d'intégration
La ligature directe en une seule grande unité réplicative est prohibitive en raison de la relation de seuil pour vₘₐₓ. Les unités intégrées doivent rester compétitives face à leurs propres mutants pour continuer d'évoluer et éviter de perdre leur information spécifique. La question d'intégration posée est la suivante : « Comment envisager une intégration de molécules concurrentes autrement que par ligature en une seule grande unité réplicative, ce qui est prohibitive en raison de la relation de seuil pour vₘₐₓ ? (Notons que les unités à intégrer doivent rester compétitives vis-à-vis de leurs mutants afin de continuer d'évoluer et de ne pas perdre leur information spécifique.) »
Les voies possibles incluent :
- Couplage fonctionnel: les molécules coopèrent catalytiquement sans fusion covalente.
- Compartimentation: les composants restent ensemble dans un volume délimité.
- L'organisation hypercyclique: les concurrents sont intégrés par le biais d'un cycle catalytique.
Toute voie doit permettre aux unités intégrées de rester compétitives face à leurs propres mutants.
Pourquoi l'organisation hypercyclique de gènes séparés ?
Un seul grand génome accumule une explosion combinatoire de séquences mutantes à mesure que sa longueur augmente. Pour 100 sites, il existe 100 mutants à une erreur, 4950 mutants à deux erreurs, 161 700 mutants à trois erreurs, et ainsi de suite. La réplication sans erreur devient impossible au-delà du seuil d'erreur. L'organisation hypercyclique répartit l'information et permet une sélection parmi les modules mutants, réduisant la charge de maintenance d'un seul long génome.
Limites et améliorations
Les limites de l'organisation hypercyclique incluent la vulnérabilité aux parasites, les contraintes du seuil d'erreur sur le contenu informationnel total, et une coordination lente ou inefficace entre gènes séparés. Les améliorations ou transitions proposées incluent une intégration structurelle plus étroite, la compartimentation, et l'évolution d'un génome unique assurant la co-ségrégation des gènes coopérants.
Couplage catalytique d'ordre supérieur
Le couplage catalytique d'ordre supérieur se produit lorsque des hypercycles catalysent d'autres hypercycles. Cela étend l'intégration au-delà d'un seul cycle mais introduit de nouveaux défis parasitaires, de coordination et de stabilité. Dans les hypercycles couplés à la traduction, le couplage de la réplication à la synthèse polypeptidique ajoute la formation de complexes et des constantes d'association ; les limites de faible et haute concentration et la cinétique saturante modifient les mêmes contraintes d'intégration et de parasitisme.
Couplage parasitaire
Un anneau hypercyclique soutient un nœud parasitaire qui ne retourne aucune aide catalytique, tandis que des flèches en pointillés montrent un hypercycle catalysant un second hypercycle. Le simplexe de concentration en encart marque les points fixes aux sommets dominés par le parasite et par le membre d'hypercycle, ainsi que le seuil d'invasion c