Aplicación del análisis de puntos fijos a las cuasi-especies
HYC-1979Lesson 4: Advantage, Word, Words
00:00
A punto fijo de la dinámica de mutación–selección es un vector de concentración x* que el flujo deja inalterado. En el símplex de concentración, donde las concentraciones normalizadas suman uno, el análisis de puntos fijos separa tres resultados selectivos: coexistencia estable, selección darwiniana de una secuencia maestra localizada y selección definitiva de una unidad integrada.
La ecuación general de mutación–selección es
dxi/dt = Σj Qij − Ā
Aquí Qij es la probabilidad de que la plantilla j produzca el mutante i, es la tasa de replicación de la plantilla j, y Ā es la productividad excedente media que mantiene normalizada la concentración total. En un punto fijo x* el lado izquierdo se anula, por lo que
Σj Qij = Ā
En forma matricial, este es el problema de autovalores M x* = Ā x*, con diag(A). El autovector dominante proporciona la distribución estacionaria de mutantes, y su autovalor es la productividad excedente media. Este único problema de autovalores unifica los casos siguientes.
Competidores independientes:
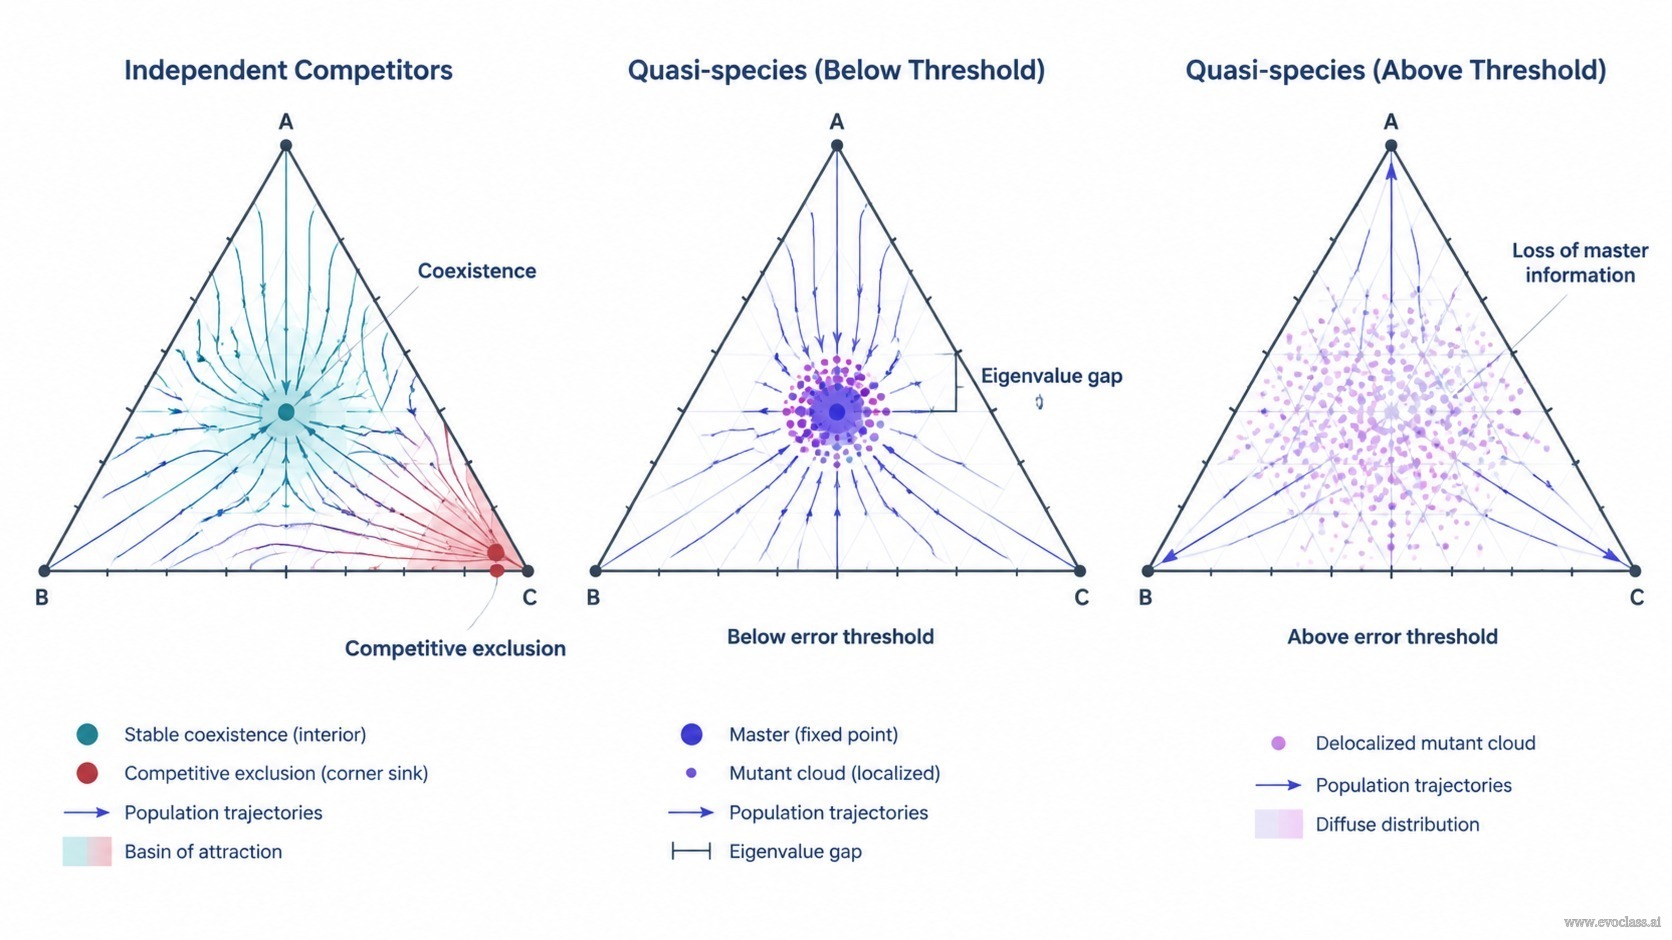
Cuando la mutación está desactivada, , y la ecuación se reduce a = ( − Ā) . Los puntos fijos se encuentran en el símplex y pueden ser atractores en los vértices o puntos de coexistencia interiores. Cuál es estable depende del grado de crecimiento de las funciones de tasa, no solo de la condición inicial. Un vértice estable significa exclusión competitiva; un punto interior estable significa coexistencia de múltiples tipos supervivientes.
Cuasi-especies: equilibrio mutación–selección
Una cuasi-especie es una distribución de mutantes estrechamente relacionados centrada en una secuencia maestra. No es un único genotipo, sino el punto fijo estable del equilibrio mutación–selección. El autovector de M determina la distribución estacionaria. La estabilidad local está regida por los modos normales del jacobiano en torno a x*: una separación positiva de autovalores favorece una cuasi-especie localizada y dominada por la maestra. Si la tasa de mutación supera el umbral de error, el punto fijo localizado pierde estabilidad y la cuasi-especie estable se deslocaliza sobre muchos mutantes. Esto es pérdida de información, no selección darwiniana ordinaria.
Taxonomía de puntos fijos en el símplex
Coexistencia estable: un punto fijo interior con múltiples tipos supervivientes.
Selección darwiniana: un vértice estable o una secuencia maestra localizada bajo exclusión competitiva.
Selección definitiva: fijación irreversible de una unidad integrada que no puede ser invadida por variantes internas.
Supuestos y límites: organización constante, acción de masas bien mezclada, poblaciones grandes deterministas y parámetros de tasa constantes. Las poblaciones finitas, los compartimentos espaciales, la recombinación y la catálisis dependiente de la frecuencia pueden desplazar las cuencas de atracción o introducir conmutaciones estocásticas entre estados localizados y deslocalizados.
Cómo leer el retrato de fase
Panel izquierdo: los competidores independientes fluyen hacia un sumidero en un vértice para la exclusión competitiva o hacia un punto interior para la coexistencia estable. Paneles central y derecho: una cuasi-especie está localizada por debajo del umbral de error y deslocalizada por encima de él; la separación de autovalores y los modos normales del jacobiano reflejan el cambio de estabilidad.
Retratos de fase del símplex
Retrato de fase de tres paneles en el símplex de concentración: los competidores independientes pueden fluir hacia un sumidero en un vértice para la exclusión competitiva o hacia un punto interior para la coexistencia estable; una cuasi-especie fluye hacia un punto fijo centrado en la maestra por debajo del umbral de error y se deslocaliza por encima de él.
PREGUNTA 1
¿Cuál es el significado físico de una cuasi-especie?
Una distribución estacionaria de mutantes mantenida por el equilibrio mutación–selección.
Una colección de secuencias no relacionadas sin variación heredable.
Un único genotipo más apto que supera a todos los mutantes.
Una nube poblacional transitoria que deriva indefinidamente y nunca se asienta en un punto fijo.
✅ ¡Correcto!
Una cuasi-especie no es un genotipo, sino una distribución estacionaria de mutantes producida y mantenida por el equilibrio mutación–selección.
❌ Incorrecto
Revisa la interpretación del autovector: el autovector dominante de M proporciona la distribución estacionaria de mutantes.
PREGUNTA 2
¿Cuál es la base molecular de la selección y la evolución? La fuente afirma que dicho comportamiento no es un atributo global de cualquier forma arbitraria de materia, sino la consecuencia de propiedades peculiares que deben especificarse. ¿Qué opción especifica esas propiedades?
El autoensamblaje espontáneo de la materia, que surge automáticamente en cualquier mezcla química.
Únicamente la presión ambiental externa, independiente de la copia de la plantilla.
Replicación, mutación, catálisis y diferencias de tasa heredables bajo restricciones de selección.
Fluctuaciones puramente aleatorias sin componente heredable.
✅ ¡Correcto!
La selección y la evolución requieren propiedades moleculares especificadas: replicación, mutación, catálisis y diferencias de tasa heredables.
❌ Incorrecto
La fuente enfatiza propiedades moleculares peculiares, no una propiedad universal de la materia.
PREGUNTA 3
En un punto fijo x* de la ecuación de mutación–selección, ¿qué relación debe cumplirse?
Σⱼ Qᵢⱼ Aⱼ xⱼ* = Ā xᵢ*
xᵢ* = 0 para todo i
Ā = 0
✅ ¡Correcto!
Esta es la ecuación de autovalores M x* = Ā x* escrita componente a componente, con diag(A).
❌ Incorrecto
Iguala dxᵢ/dt = 0 en la ecuación general y agrupa los términos.
PREGUNTA 4
Para competidores independientes , ¿qué determina si el resultado estable es un punto de coexistencia interior o un atractor en un vértice?
El número de especies; la coexistencia es imposible para .
El grado de crecimiento de las funciones de tasa.
Únicamente la tasa de mutación.
Solo las condiciones iniciales; el grado de crecimiento es irrelevante.
✅ ¡Correcto!
Con , la ecuación es dxᵢ/dt = (Aᵢ − Ā)xᵢ; el grado de las funciones de crecimiento controla qué punto fijo es estable.
❌ Incorrecto
La diapositiva contrasta , grados de crecimiento 1 y 2 con coexistencia frente a exclusión competitiva.
PREGUNTA 5
¿Qué le ocurre a una cuasi-especie localizada centrada en la maestra cuando la tasa de mutación supera el umbral de error?
La secuencia maestra se vuelve progresivamente más dominante a medida que mejora la fidelidad.
El punto fijo se deslocaliza en una nube de mutantes y se pierde información.
La cuasi-especie colapsa en un único genotipo sin mutantes.
La separación de autovalores crece sin límite, fijando la secuencia maestra en su lugar.
✅ ¡Correcto!
Por encima del umbral de error, el punto fijo localizado pierde estabilidad; la cuasi-especie estable se extiende sobre muchos mutantes, lo que constituye una pérdida de información más que una selección darwiniana ordinaria.
❌ Incorrecto
Comprueba la estabilidad del punto fijo centrado en la maestra a medida que aumenta la tasa de mutación.
Caso práctico: umbral de error en una cuasi-especie de dos miembros
Utiliza el análisis de puntos fijos en el símplex de concentración.
Considera una secuencia maestra M y un mutante m. Las tasas de replicación son y . La matriz de mutación es Q_MM = q, Q_mM = 1 − q, Q_mm = 1, Q_Mm = 0 (mutación unidireccional de M a m). Normaliza . El punto fijo resuelve Q_ij * = Ā * con Ā = Q_ij *.
Q
Escribe las ecuaciones de punto fijo para * y *, y explica cómo el autovector dominante de diag(A) proporciona la distribución estacionaria.
Respuesta: Componente a componente, para : Q_MM * + Q_Mm * = Ā *. Con Q_Mm = 0, esto da (Q_MM − Ā) * = 0, así que para * ≠ 0 necesitamos Ā = Q_MM . Para : Q_mM * + Q_mm * = Ā *. Sustituyendo Ā y * = * se obtiene * = (q )/(), que para y es * = 2q − 1, con * = 2(1 − q). En forma matricial diag(A), y la distribución estacionaria es el autovector dominante de M con autovalor Ā; sus componentes son las concentraciones estacionarias de M y m.
Q
Para frente a , predice si la cuasi-especie estable está localizada o deslocalizada, y relaciona esto con el umbral de error y la pérdida de información.
Respuesta: En el autovalor de la maestra Q_MM = 4q = 3.96 supera a , por lo que * = 2q − y la cuasi-especie está localizada en M con una gran separación de autovalores. En el autovalor de la maestra ha caído a 4q = : este es el umbral de error, * = 0, y la distribución está dominada por el mutante, por lo que se pierde la información de la maestra. La transición no es una selección darwiniana ordinaria porque el mutante m no es más apto que M; los errores de replicación superan a la secuencia maestra.
¿Cuál es el significado físico de una cuasi-especie? ¿Cuál es la base molecular de la selección y la evolución? Evidentemente, dicho comportamiento no es un atributo global de cualquier forma arbitraria de materia, sino la consecuencia de propiedades peculiares que deben especificarse. 7